本文展示了一种利用原子力显微镜(AFM)通过微压痕法表征活细胞力学特性的实验方案。
本文内容
摘要
摘要
细胞和细胞外基质(ECM)的力学特性在许多生物过程中发挥着重要作用,包括干细胞分化、肿瘤形成以及伤口愈合。细胞和ECM刚度的变化通常是细胞生理状态改变或组织发生疾病的征兆。因此,细胞刚度是评估细胞培养状态的一个重要指标。在用于测量细胞和组织刚度的多种方法中,利用原子力显微镜(AFM)进行微压痕测试可提供一种可靠测量活细胞刚度的方法。该方法已被广泛应用于表征多种材料的微尺度刚度,范围从金属表面到柔软的生物组织和细胞。该方法的基本原理是使用选定几何形状的AFM探针压入细胞,并通过检测AFM悬臂的弯曲程度来测量施加的力。将力-压痕曲线拟合到对应探针几何形状的赫兹(Hertz)模型,即可获得材料刚度的定量测量结果。本文演示了利用AFM表征活细胞刚度的操作流程,展示了关键步骤,包括AFM校准、力-距离曲线采集以及使用MATLAB程序进行数据分析的过程。同时讨论了该方法的局限性。
引言
单个细胞及其周围细胞外基质(ECM)的力学特性,尤其是刚度,对许多生物过程至关重要,包括细胞生长、运动、分裂、分化以及组织稳态。1 已证明细胞的机械刚度主要由细胞骨架决定,尤其是肌动蛋白和中间纤维网络以及与之相关的其他蛋白质。2 机械测试结果 体外 肌动蛋白和中间纤维网络表明,细胞力学在很大程度上依赖于细胞骨架结构及其内部的预应力。3-5 活细胞的刚度被视为评估细胞骨架结构的指标6,肌球蛋白活性7 以及许多其他细胞过程。更重要的是,细胞力学性质的改变通常与多种疾病状态密切相关,例如肿瘤的形成和转移。8-10 因此,监测活细胞的机械刚度可为监测细胞生理状态、检测和诊断疾病提供一种新方法8 ;并评估药物治疗的效果。11,12
已开发出多种方法用于测量细胞的弹性,包括粒子追踪微流变学13-16、磁扭转细胞力学17、微吸管抽吸18,19和微压痕技术20-22。粒子追踪微流变学通过追踪注入细胞内的亚微米荧光颗粒或细胞骨架内固有标记物的热振动来实现测量23。细胞的弹性与黏性特性可通过涨落-耗散定理,由测得的粒子位移计算得出14,23。该方法能够在细胞内不同位置以高空间分辨率同时测量局部力学性质。然而,将荧光颗粒注入细胞可能引起细胞功能、细胞骨架结构的改变,从而影响细胞力学特性。微吸管抽吸法通过直径为1至5 μm的微吸管施加负压,将一小部分细胞膜吸入管内,再根据所施加的负压与细胞膜形变计算细胞刚度18。但该方法无法检测细胞内刚度的异质性分布。磁扭转细胞力学(MTC)利用磁场对附着在细胞膜上的超顺磁性微珠施加扭矩17,细胞刚度则由施加的扭矩与细胞膜扭转形变之间的关系推导得出。然而,在MTC方法中难以控制磁珠的位置,且高分辨率表征扭转形变也存在挑战。微压痕技术使用具有明确几何形状的压头压入细胞,压痕力与细胞产生的压入深度通常符合赫兹模型的预测。通过将力-压痕曲线拟合至赫兹模型,可计算出细胞的杨氏模量。尽管该方法存在接触点确定的不确定性、赫兹模型适用性以及可能对细胞造成物理损伤等局限性,仍被广泛用于组织和细胞力学性质的测试。在众多微压痕装置20中,原子力显微镜(Atomic Force Microscope, AFM)已实现商业化,并被广泛应用于活细胞和组织力学特性的表征21,24-27。
本文演示了使用 Asylum MFP3D-Bio 原子力显微镜(AFM)表征细胞力学性质的实验步骤。原子力显微镜不仅能够提供细胞的高分辨率形貌图像,还被广泛应用于组织细胞力学特性的研究。AFM 压痕原理如图1所示。AFM 悬臂从细胞上方数微米处开始接近细胞,与细胞表面接触后继续压入,使悬臂的偏转达到预设的设定值,随后从细胞表面撤回。在此过程中,悬臂的偏转量随其位置的变化被记录下来,如图1所示。在接触细胞之前,悬臂在培养基中移动,无明显偏转。当压入细胞时,悬臂发生弯曲,偏转信号随之增加。悬臂被建模为弹性梁,其偏转量与施加于细胞的力成正比。通过设定悬臂最大偏转量,可限制施加于样品的最大作用力,从而避免对细胞造成损伤。在图1中从点 b 到点 c 的力曲线部分(即探针压入细胞的过程)可拟合赫兹(Hertz)模型,以提取细胞的刚度参数。
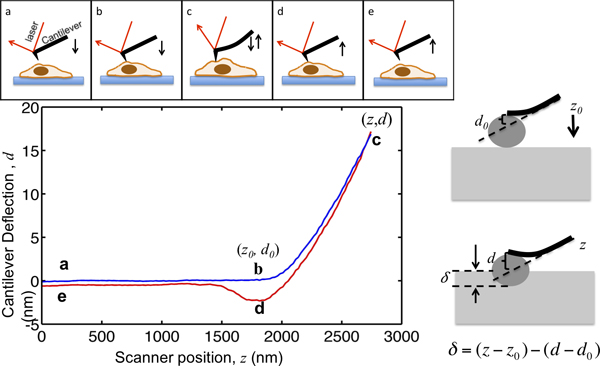
图1. 原子力显微镜微压痕示意图及力-曲线解读。 上图显示了由压电扫描器驱动的原子力显微镜悬臂的运动。悬臂的垂直位置 z 以及悬臂偏转信号 d 在过程中进行记录。悬臂从位于细胞上方几微米处的点 a 开始移动。在接近细胞的过程中,样品压痕 δ 保持为零,直到到达点 b,此时探针尖端与细胞接触。图中点 b 的坐标是数据分析的关键值,记为 (z0,d0>)。从 b 到 c,悬臂对细胞进行压痕,直到悬臂偏转达到设定点,该设定点被设定为目标最大压痕力与悬臂弹簧常数的比值。一旦偏转信号达到预设的最大值,悬臂便从细胞回撤至点 d,此时常因针尖-样品间的黏附作用而被向下拉扯,随后脱离细胞并返回至初始位置 e。右图展示了压痕深度与记录信号之间的关系 z 和 d 信号。左下方面板显示的是一个代表性力曲线图,该悬臂梁的弹簧常数测得为0.07 N/m,设定最大压入深度为17 nm,从而使施加到样品上的最大压入力为1.2 nN。图中标注了压入过程中的关键位置。
方案
1. 标定悬臂梁的弹簧常数
- 根据制造商的说明将悬臂装入原子力显微镜(AFM)。每次实验前必须使用乙醇清洁悬臂支架,以减少细菌污染,避免在AFM测量过程中影响细胞培养。
- 校准InvOLS(反向光学杠杆灵敏度)。该参数描述的是悬臂每发生1纳米偏转时,光电二极管的响应电压(单位:伏特)。
- 将一块洁净的玻璃载片放置于样品台上,然后安装AFM探头,并根据制造商的说明调节激光束和对准。使AFM针尖接触玻璃载片表面。
- 在压电扫描器收回的状态下,重新调整反射镜,使光电二极管读数为-2 V。执行力谱测量,触发点(最大光电二极管响应)设为+2 V。
- 在压电扫描器收回的状态下,重新调整反射镜,使光电二极管读数为-2 V。执行力谱测量,触发点(最大光电二极管响应)设为+2 V。注意:此处的电压值是Asylum AFM仪器特有的,应根据制造商提供的技术规格设定相应数值。
数据采集完成后,放大观察力曲线中的刚性接触区域。对该区域进行线性拟合以获得斜率,单位为V/nm。该值的倒数即为悬臂-光电二极管组合系统的光学灵敏度。 - 将反射镜重新对准,使自由偏转状态下的读数为0 V。
- 校准悬臂弹簧常数。采用热调谐法(thermal-tune method)测定悬臂的弹簧常数28。
- 完成InvOLS校准后,将扫描器抬离样品台,确保针尖与样品之间无任何相互作用。
- 开始采集热振动数据。在此过程中,记录悬臂梁的热振动信号。AFM软件分析该热振动的功率谱,并在数据窗口中绘制曲线。
- 采集数秒数据后,对位于最低频率(基频共振峰)处的数据段进行拟合,以确定悬臂的弹簧常数。
2. 上样
- 如果原子力显微镜(AFM)载物台尚未配备培养皿加热器附件,请先安装该附件。
- 将温度设置为 37 °C,并等待 20 分钟,使系统达到稳定的热平衡状态。
- 将培养皿放置在 AFM 载物台上,并使用加热器附带的夹具固定。为避免对细胞造成损伤,应尽量缩短培养皿从培养箱取出后至放置到载物台上的时间。若测量时间超过 30 分钟,应使用不含 CO2 的培养基替换常规培养基。
- 在 AFM 悬臂梁探针尖端滴加少量 37 °C 的培养基,并降低 AFM 探头,直至探针尖端刚好浸入液体中。
- 利用顶部的 CCD 相机重新调整激光束在悬臂梁上的位置(由于培养基折射率的变化,液体中的激光对准位置将与空气中不同)。
- 将 AFM 探针与培养皿表面的洁净区域接触。
- 按照前述方法,在液体环境中对 InvOLS 进行校准,以确定悬臂梁的灵敏度。
注意:a) 如果细胞在水凝胶上培养,应在培养皿底部充满细胞培养基的情况下,提前对倒置光学杠杆系统(InvOLS)进行校准。当切换至细胞样本时,需特别注意不要改变激光束与悬臂的对准。b) 每当激光对准发生变化时,必须重新校准InvOLS。c) 建议采用多条校准曲线得到的InvOLS值取平均,因为每次校准产生的InvOLS值均有所不同。然而,InvOLS的变异程度相较于其平均值较小。例如,对弹簧常数为0.06 N/m的Bruker DNP-10悬臂梁在液体中进行100次校准,得到的平均InvOLS值为66.3 nm/V,标准差仅为0.5 nm/V。
3. 收集细胞压痕的力曲线
- 选择一个细胞进行压痕。借助光学显微镜,移动载物台,使悬臂位于细胞上方,确保探针尖端位于细胞核周区域。可通过向X和Y扫描器施加偏移量来精确调整悬臂的位置。
注意:在移动样品台以选择目标细胞时,必须将原子力显微镜(AFM)悬臂从样品表面撤回。这可以保护悬臂不与样品发生碰撞,因为样品表面可能并不平整。 - 切换至力谱模式。将压痕速率为设定在1–10 μm/sec范围内,足够低以避免流体动力学效应。
- 设置偏转触发点,以限制最大压痕力,防止对细胞造成损伤。选择“相对触发”选项,以校正偏转信号中可能出现的漂移。对于大多数样品,2 nN的最大力是一个合适的起始值。然而,该值应根据样品的刚度进行调整。对于较软的样品,应使用较低的力值,以避免对样品产生过度压痕;对于较硬的样品,则应使用较高的力值,以产生可测量的压痕。
- 设置足够的力距离,以确保在每次力测量之间探针尖端能完全脱离细胞。通常,力距离设为5 μm。
- 命令AFM采集一条单力曲线。
- 在每个细胞的核周区域不同位置至少采集三条力曲线。尽管在每个细胞上采集多条曲线有助于获得可靠的统计数据,但采集过多的力曲线可能导致细胞因AFM探针施加的应力而发生刚度变化。
- 数据采集完成后,收回探针尖端,并根据特定样品条件下对细胞刚度进行良好统计分析所需的数量,重复步骤3.1–3.6。通常,每种条件需测量30个细胞。
为了表征单个细胞内刚度的分布,采用力图模式。在力图模式下,设定扫描范围以包含目标区域;设定适当的分辨率;设定与单个力曲线实验所选参数一致的压痕参数;随后原子力显微镜将逐点扫描所定义的样品区域,并在样品区域的每个像素点上采集单个力曲线。
4. 数据分析
使用自定义的 MATLAB 程序分析记录的力曲线,以计算细胞刚度。以下是该 MATLAB 程序的简要说明:
- MATLAB 程序识别接触点坐标 z0 和 d0(参见 图1)采用源自Lin已发表方法的一种算法 等 29:
- 对力曲线中的每个数据点,在关注点左侧的数据进行线性拟合,在右侧使用赫兹模型拟合(以选定的点作为初始接触点),直至设定的最大压痕深度(推荐 200–300 nm)。
- 对每个点,计算两种拟合的相对均方根误差,并将这些值相加。
- 将获得最小总拟合误差的点选为接触的初始点。
注意: 通过采用黄金分割搜索法而非线性扫描整个力曲线,可减少计算时间。 - 样品变形量 δ 和压痕力 F 的计算公式如下:

- 采用最小二乘法拟合 F 接触后区域的 vs. δ 数据, z ≥ z0 ,拟合赫兹模型以提取杨氏模量, E 细胞的

,其中 v 是泊松比。
注意: 当δ超过样品厚度(细胞高度)的10%时,所测得的细胞刚度会受到基底刚度的影响。细胞核周区域的厚度通常为数微米量级。因此,仅对F-δ曲线的前200–300 nm范围进行赫兹(Hertz)模型拟合。
结果
图2a展示了从培养在塑料表面、杨氏模量分别为3,000 Pa和17,000 Pa的聚丙烯酰胺凝胶上的3T3成纤维细胞中获取的三条代表性力-距离曲线。在仔细确定曲线中的接触点后,将作用力随细胞形变量的变化关系绘制于图2b中。当施加的力小于0.3 nN时,使用金字塔形探针可在培养于3 kPa聚丙烯酰胺凝胶上的细胞中压入3微米;相比之下,使用相同探针需施加超过1.6 nN的力才能在普通培养皿中生长的细胞上压入500纳米。从该图中可以明显看出,培养于柔软聚丙烯酰胺凝胶上的细胞比培养于坚硬培养皿上的细胞更柔软。将力-形变(δ)曲线的第一段(δ < 30 nm)拟合至赫兹(Hertz)模型,得到这三种细胞的杨氏模量分别为10 kPa、1.2 kPa和1.10 kPa。培养在培养皿上的细胞比培养在聚丙烯酰胺凝胶上的细胞刚性高出约100倍。Solon 等曾报道过类似结果25,他们发现成纤维细胞会主动增强其细胞骨架的刚性,以适应其所黏附基底的硬度。其他多种细胞类型也被报道在较硬基底上培养时会变得更刚硬30。
需要注意的是,压痕可能会导致细胞发生塑性变形,从而产生如紫色曲线所示的拐点。通常情况下,此类曲线应从数据分析中排除。然而,如果拐点出现在拟合数据范围之外,则该曲线仍可用于计算细胞刚度。例如,紫色曲线中的拐点出现在约 400 nm 处,此时仍可通过仅对 δ = 30 nm 以内的数据点按赫兹模型(Hertz model)进行拟合,得到 1.2 kPa 的刚度值。此外,根据样品的刚度调整“触发点”也非常重要。例如,蓝色曲线来自培养在 3 kPa 聚丙烯酰胺凝胶上的软细胞。若将相对偏转触发点设为 5 nm,原子力显微镜(AFM)探针将压入细胞内部达 3 微米。在细胞刚度测量过程中应避免如此大的压痕,因为它可能导致细胞膜破裂并杀死细胞。许多其他因素,包括力-曲线采集过程中的探针速度和数据采集速率,也会影响所获取力-曲线的质量,进而影响细胞刚度的测定结果31。为了获得可靠测量结果,必须优化所有这些参数,以获取如图 2a中红色曲线所示的“干净”力-曲线,其特征为接触前段平坦,接触后段呈非线性上升。
图3a 显示了细胞培养皿中一个3T3成纤维细胞的荧光图像。该细胞转染了GFP标记的波形蛋白(vimentin),一种中间丝蛋白。在80 μm × 80 μm的区域内进行了原子力显微镜(AFM)力映射,分辨率为32 × 32像素。所得的刚度图如图3b所示。细胞不同区域的刚度存在差异,其中片状伪足区域比围绕坚硬细胞核的核周区域更硬且异质性更高。

图 2. 力曲线数据及分析得到的力-压痕曲线。 a) 在玻璃(红色)、17 kPa 聚丙烯酰胺凝胶(紫色)和 3 kPa 聚丙烯酰胺凝胶(蓝色)上培养的 3T3 成纤维细胞所获得的三组代表性力曲线数据。这些曲线经过平移处理,使接触点(z0,d0)位于坐标系原点(0,0)。b) 由 a) 计算得到的压痕-力曲线,并使用前 300 nm 的压痕数据拟合赫兹(Hertz)模型。图 b) 插图显示了前 300 nm 压痕范围内对赫兹模型的拟合优度;圆圈代表实验数据,线条代表拟合数据。本例中悬臂梁的弹簧常数为 0.062 N/m。

图3. a) 转染了GFP波形蛋白的3T3成纤维细胞的荧光图像。 图像中仅显示细胞的一部分。比例尺代表20 μm。b) 相同区域的32 × 32像素刚度图。每个像素代表2.5 μm。
讨论
原子力显微镜(AFM)压痕法在表征活细胞力学特性方面具有优势。尽管其灵敏度低于磁力扭转细胞仪和光镊技术(后者可测量皮牛顿级别的力32),但AFM能够检测从数十皮牛顿到数百纳牛顿范围内的样品阻力,这一力的范围与使用微移液管施加于细胞的力相当19。该力的范围适用于在各类细胞中产生可测量形变的需求19。AFM的高空间分辨率使其能够在亚微米尺度上表征组织及单个细胞内部的力学异质性33。此外,它还支持对活细胞进行实时动态测量。多种专为生物样品设计的AFM型号可在液体环境中运行,并配备加热载物台,实现精确的温度控制,从而在测量过程中维持细胞的生理环境。AFM压痕技术已成功应用于多种细胞类型的力学特性测量25,34-36,并被广泛用于评估细胞分化过程以及多种疾病状态下细胞力学性质的变化30,37。
从力-曲线计算刚度的一个重要步骤是确定探针首次与细胞接触的位置。接触点的不确定性会影响弹性模量的计算结果31。对于较硬的材料,探针与样品接触后,悬臂偏转信号会急剧上升,接触点可轻易识别为曲线中的转折点。然而,由于细胞刚度较低,细胞的力-曲线中通常不会出现如此明显的转折点(见图2)。为此,我们开发了一套MATLAB代码,采用Lin et al.29提出的算法,精确识别软样品力-曲线中的接触点。该代码可处理来自软样品的力-曲线,使我们能够自动分析数据,包括自动搜索接触点并将压痕数据拟合至赫兹(Hertz)模型。该MATLAB代码被用于分析在同一块聚丙烯酰胺凝胶相同位置采集的60条力-曲线,该凝胶的刚度通过整体流变学测量确定为7.2 kPa。代码成功识别了这些曲线中的接触点,接触点位置的变化范围小于15 nm。基于这些接触点,计算得到的平均刚度为6.9 kPa,标准差为0.2 kPa,最大变化范围为0.6 kPa。本实验结果为评估所测刚度的不确定性提供了依据。15 nm的接触点不确定性导致的刚度不确定性低于平均值的10%。对于更软的凝胶,其偏转信号水平极低,接触点的不确定性可能高达30 nm,从而导致刚度的不确定性高达30%。该代码作为本文的补充材料提供。
原子力显微镜(AFM)可可靠地测量从低于100 Pa到106 Pa范围内的刚度,覆盖了大多数组织和细胞的刚度范围。为了获得可靠的测量结果,选择弹簧常数与样品刚度相匹配的AFM悬臂梁至关重要。当悬臂梁过硬时,其偏转太小而难以检测,并可能损伤细胞;若悬臂梁过软,则无法充分压入细胞以获得可靠的材料特性,且其热振动可能主导力-距离曲线。对于培养在刚性培养皿上的大多数细胞类型,使用弹簧常数为0.06 N/m并带有锥形探针的悬臂梁是适用的。然而,这类悬臂梁不适用于测量培养在软基底上的细胞。如图2所示,培养在3,000 Pa聚丙烯酰胺凝胶上的细胞非常柔软,需要3 μm的压入深度才能在悬臂梁上产生5 nm的偏转。此时力-距离曲线极为平缓,接触前与接触后的区域几乎没有差异,导致接触点的判定存在较大不确定性,从而影响所计算刚度值的准确性。使用更软的悬臂梁仅能略微改善接触前后区域的对比度。对于此类柔软材料的测量,推荐使用带有大尺寸球形探针的悬臂梁。例如,采用直径为10微米球形探针、弹簧常数为0.06 N/m的悬臂梁,可用于测量刚度低于100 Pa的样品。带有球形探针的悬臂梁可从多家供应商处商业采购,也可通过将微米级小球粘附至无尖端悬臂梁上自行制备。球形探针可提供更大的偏转信号,并有助于防止对细胞膜造成损伤。但由于其与细胞接触面积较大,不适用于高分辨率的刚度成像。 表1列出了推荐用于细胞刚度测量的AFM探针。
| 型号 | 弹簧常数 (N/m) | 探针类型 | 探针半径 (nm) |
| Bruker DNP10-D | 0.06 | 锥形 | 20 |
| Bruker MLCT-B/C/E | 0.01/0.02/0.03 | 锥形 | 20 |
| Novascan PT.GS | 0.01/0.03/0.06 | 玻璃球 | 2,000/5,000/10,000 |
| Novascan PT.PS | 0.01/0.03/0.06 | 聚苯乙烯球 | 1,000/4,500/10,000 |
表1. 适用于细胞压痕实验的原子力显微镜探针,列出了相应的弹簧常数和针尖几何形状。
还应指出本方法的局限性。用于拟合压痕数据的赫兹模型是一种简化的模型。该模型通过轴对称压头预测纯弹性材料在无限小压痕下的力-压痕关系。然而,赫兹模型的一些假设并不适用于细胞压痕实验。
赫兹模型假设材料是均质且线弹性,而细胞具有异质性(见图3)并表现出非线性弹性。在片状伪足区域,由于肌动蛋白细胞骨架结构的不均一性,其异质性更为显著。细胞的机械刚度通常报告为从相对均质的核周区域获取的三条或更多力-距离曲线中提取的平均刚度值。25,36 由肌动蛋白和中间纤维重构的网络属于应变硬化材料,即在较大形变下变得更硬。38,39 此类非线性弹性已在活细胞中观察到,但赫兹模型未将其纳入考虑。为了限制非线性弹性对报告细胞刚度的影响,仅将压痕数据的前300 nm拟合至赫兹模型。
赫兹模型还假设材料是完全弹性的。然而,细胞及其细胞骨架属于黏弹性材料,其刚度依赖于测量的时间尺度。在较短的时间尺度下,悬臂的偏转主要来自细胞的弹性响应;但在较长的时间尺度下,样品会发生蠕变,表现出更软的力学响应。原子力显微镜(AFM)压痕的时间尺度由探针的压入速度控制。因此,只有在以相同压入速度获取力-距离曲线时,所观察到的细胞刚度差异才具有可比性。为了定量提取细胞的频率依赖性黏弹性,已发展出AFM“力调制”方法,即在较大的静态压痕基础上叠加高频小幅振荡21,27。
赫兹模型中关于样品厚度无限的假设不适用于细胞。细胞在核周区域的厚度通常为几微米,在胞质边缘区域的厚度则为几百纳米。已有研究对样品有限厚度进行了修正31,40。力图谱实验所获取的数据包含压痕数据和细胞高度数据。局部样品厚度可根据高度数据计算得出。未来仍需进一步工作,以在力图谱数据的分析中实现对样品厚度的修正。
综上所述,本文介绍了一种利用Asylum MFP3D-Bio原子力显微镜表征活细胞机械刚度的实验方案。原子力显微镜(AFM)的操作原理及MATLAB数据分析流程适用于所有其他型号的AFM设备。近年来,光学显微镜技术(包括明场显微镜、共聚焦显微镜和全内反射荧光显微镜(TIRF))已与原子力显微镜结合,用于在机械刺激下对细胞进行实时成像41,42。这些联用系统还可同时测量细胞力学特性并成像细胞骨架组分。将局部刚度数据与局部细胞骨架组分的分布相关联,将有助于深入理解细胞骨架组分在细胞力学中的作用。
致谢
作者感谢宾夕法尼亚大学的 Paul Janmey 博士提供了本文所用的细胞系。QW 还感谢 J.F. Byfield 和 Evan Anderson 就原子力显微镜(AFM)技术提出的富有见地的讨论。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 原子力显微镜 | Asylum Research | MFP3D-BIO |
参考文献
- Discher, D. E., Janmey, P., Wang, Y. L. Tissue cells feel and respond to the stiffness of their substrate. Science. 310, 1139-1143 (2005).
- Wagner, O. I., et al. Softness, strength and self-repair in intermediate filament networks. Exp. Cell Res. 313, 2228-2235 (2007).
- Wang, N., et al. Mechanical behavior in living cells consistent with the tensegrity model. Proceedings of the National Academy of Sciences of the United States of America. 98, 7765-7770 (2001).
- Wang, N., et al. Cell prestress. I. Stiffness and prestress are closely associated in adherent contractile cells. American Journal of Physiology. Cell Physiology. 282, 606-616 (2002).
- Kasza, K. E., et al. Filamin A is essential for active cell stiffening but not passive stiffening under external force. Biophysical Journal. 96, 4326-4335 (2009).
- Elson, E. L. Cellular mechanics as an indicator of cytoskeletal structure and function. Annual Review of Biophysics and Biophysical Chemistry. 17, 397-430 (1988).
- Schafer, A., Radmacher, M. Influence of myosin II activity on stiffness of fibroblast cells. Acta Biomaterialia. 1, 273-280 (2005).
- Guck, J., et al. Optical deformability as an inherent cell marker for testing malignant transformation and metastatic competence. Biophysical Journal. 88, 3689-3698 (2005).
- Cross, S. E., Jin, Y. S., Rao, J., Gimzewski, J. K. Nanomechanical analysis of cells from cancer patients. Nature Nanotechnology. 2, 780-783 (2007).
- Plodinec, M., et al. The nanomechanical signature of breast cancer. Nature Nanotechnology. 7, 757-765 (2012).
- Rotsch, C., Radmacher, M. Drug-induced changes of cytoskeletal structure and mechanics in fibroblasts: an atomic force microscopy study. Biophysical Journal. 78 (00), 520-535 (2000).
- Cross, S. E., Jin, Y. S., Lu, Q. Y., Rao, J., Gimzewski, J. K. Green tea extract selectively targets nanomechanics of live metastatic cancer cells. Nanotechnology. 22, 215101(2011).
- Hoffman, B. D., Crocker, J. C. Cell mechanics: dissecting the physical responses of cells to force. Annual Review of Biomedical Engineering. 11, 259-288 (2009).
- Hoffman, B. D., Massiera, G., Van Citters, K. M., Crocker, J. C. The consensus mechanics of cultured mammalian cells. Proceedings of the National Academy of Sciences of the United States of America. 103, 10259-10264 (2006).
- Lau, A. W., Hoffman, B. D., Davies, A., Crocker, J. C., Lubensky, T. C. Microrheology, stress fluctuations, and active behavior of living cells. Physical Review Letters. 91, 198101(1981).
- Liu, J., et al. Microrheology probes length scale dependent rheology. Physical Review Letters. 96, 118104(2006).
- Deng, L., et al. Fast and slow dynamics of the cytoskeleton. Nature Materials. 5, 636-640 (2006).
- Oh, M. J., Kuhr, F., Byfield, F., Levitan, I. Micropipette Aspiration of Substrate-attached Cells to Estimate Cell Stiffness. J. Vis. Exp. (67), e3886(2012).
- Hochmuth, R. M. Micropipette aspiration of living cells. Journal of Biomechanics. 33, 15-22 (2000).
- Levental, I., et al. A simple indentation device for measuring micrometer-scale tissue stiffness. J. Phys-Condens. Mat. 22, (2010).
- Mahaffy, R. E., Park, S., Gerde, E., Kas, J., Shih, C. K. Quantitative analysis of the viscoelastic properties of thin regions of fibroblasts using atomic force microscopy. Biophysical Journal. 86, 1777-1793 (2004).
- Radmacher, M. Measuring the elastic properties of biological samples with the AFM. IEEE Engineering in Medicine and Biology Magazine: The Quarterly Magazine of the Engineering in Medicine & Biology Society. 16, 47-57 (1997).
- Crocker, J. C., Hoffman, B. D. Multiple-particle tracking and two-point microrheology in cells. Methods in Cell Biology. 83, 141-178 (2007).
- Liu, F., Tschumperlin, D. J. Micro-mechanical characterization of lung tissue using atomic force microscopy. J. Vis. Exp. (54), e2911(2011).
- Solon, J., Levental, I., Sengupta, K., Georges, P. C., Janmey, P. A. Fibroblast adaptation and stiffness matching to soft elastic substrates. Biophysical Journal. 93, 4453-4461 (2007).
- Wu, H. W., Kuhn, T., Moy, V. T. Mechanical properties of l929 cells measured by atomic force microscopy: Effects of anticytoskeletal drugs and membrane crosslinking. Scanning. 20, 389-397 (1998).
- Radmacher, M., Fritz, M., Kacher, C. M., Cleveland, J. P., Hansma, P. K. Measuring the viscoelastic properties of human platelets with the atomic force microscope. Biophysical Journal. 70, 556-567 (1996).
- Levy, R., Maaloum, M. Measuring the spring constant of atomic force microscope cantilevers: thermal fluctuations and other methods. Nanotechnology. 13, 33-37 (2002).
- Lin, D. C., Dimitriadis, E. K., Horkay, F. Robust strategies for automated AFM force curve analysis--I. Non-adhesive indentation of soft, inhomogeneous materials. Journal of Biomechanical Engineering. 129, 430-440 (2007).
- Davis, J. T., Wen, Q., Janmey, P. A., Otteson, D. C., Foster, W. J. Muller cell expression of genes implicated in proliferative vitreoretinopathy is influenced by substrate elastic modulus. Investigative Ophthalmology & Visual Science. 53, 3014-3019 (2012).
- Engler, A. J., Rehfeldt, F., Sen, S., Discher, D. E. Microtissue elasticity: Measurements by atomic force microscopy and its influence on cell differentiation. Method Cell Biol. 83, 521-545 (2007).
- Lele, T. P., et al. Tools to study cell mechanics and mechanotransduction. Methods in Cell Biology. 83 (07), 443-472 (2007).
- A-Hassan, E., et al. Relative microelastic mapping of living cells by atomic force microscopy. Biophysical Journal. 74, 1564-1578 (1998).
- Costa, K. D., Sim, A. J., Yin, F. C. Non-Hertzian approach to analyzing mechanical properties of endothelial cells probed by atomic force microscopy. Journal of Biomechanical Engineering. 128, 176-184 (2006).
- Xiong, Y., Lee, A. C., Suter, D. M., Lee, G. U. Topography and nanomechanics of live neuronal growth cones analyzed by atomic force microscopy. Biophysical Journal. 96, 5060-5072 (2009).
- Byfield, F. J., et al. Absence of filamin A prevents cells from responding to stiffness gradients on gels coated with collagen but not fibronectin. Biophysical Journal. 96, 5095-5102 (2009).
- Cross, S. E., et al. AFM-based analysis of human metastatic cancer cells. Nanotechnology. 19, 384003(2008).
- Storm, C., Pastore, J. J., MacKintosh, F. C., Lubensky, T. C., Janmey, P. A. Nonlinear elasticity in biological gels. Nature. 435, 191-194 (2005).
- Wen, Q., Janmey, P. A. Polymer physics of the cytoskeleton. Current Opinion in Solid State & Materials Science. 15, 177-182 (2011).
- Dimitriadis, E. K., Horkay, F., Maresca, J., Kachar, B., Chadwick, R. S. Determination of elastic moduli of thin layers of soft material using the atomic force microscope. Biophysical Journal. 82 (02), 2798-2810 (2002).
- Trache, A., Lim, S. M. Live cell response to mechanical stimulation studied by integrated optical and atomic force microscopy. J. Vis. Exp. (44), e2072(2010).
- Lim, S. M., Kreipe, B. A., Trzeciakowski, J., Dangott, L., Trache, A. Extracellular matrix effect on RhoA signaling modulation in vascular smooth muscle cells. Exp. Cell Res. 316, 2833-2848 (2010).
重印与许可
