本实验方案描述了用于探究的感染实验方法 志贺氏菌 黏附、侵袭和细胞内复制 体外 上皮细胞系
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
人类适应的肠道致病菌 志贺氏菌 每年导致数百万例感染,对儿科患者的长期生长发育造成影响,并且是全球腹泻相关死亡的主要原因之一。感染后,病原体穿过胃肠道并侵染结肠上皮细胞,从而引发水样或血性腹泻。由于抗生素耐药性急剧上升,且目前尚无获批疫苗,因此建立标准化的研究方案对于深入研究这一严重病原体至关重要。本文介绍了一系列用于研究其分子致病机制的方法。 志贺氏菌 使用 体外 结肠上皮细胞中细菌黏附、侵袭及胞内复制的分析。在进行感染分析之前,毒力表型的 志贺氏菌 菌落通过在琼脂平板上吸收刚果红染料来验证。在细菌培养过程中,也可考虑使用添加了补充成分的实验室培养基以模拟 体内 条件下,采用标准化实验流程,将细菌细胞以既定的感染复数接种于培养板中的结肠上皮细胞,以感染结肠上皮细胞,并根据需要进行调整,以分析感染的各个阶段。对于黏附实验, 志贺氏菌 细胞在低培养基水平下孵育,以促进细菌与上皮细胞的接触。在侵袭和胞内复制实验中,均采用庆大霉素处理不同时间,以清除胞外细菌,从而评估细菌侵袭情况和/或定量胞内复制速率。所有感染实验均通过梯度稀释感染后的上皮细胞裂解液,将细菌菌落形成单位在刚果红琼脂平板上进行计数,并相对于接种滴度进行归一化,以分别定量黏附、侵袭和/或胞内细菌数量。上述方法可实现对感染各阶段的独立表征与比较 志贺氏菌 感染上皮细胞以成功研究该病原体。
引言
由肠道致病菌引起的腹泻病是全球重大的公共卫生负担。2016年,腹泻病在全球造成130万人死亡,是五岁以下儿童死亡的第四大原因1,2。革兰氏阴性肠道致病菌Shigella是志贺菌病的致病因子,而志贺菌病是全球腹泻相关死亡的主要原因之一3。每年,中低收入国家的儿童中因志贺菌病导致大量发病和死亡4,5,而在高收入国家,感染通常与托儿所、食源性和水源性暴发有关6,7,8,9。疫苗研发效果不佳10以及抗菌药物耐药性(AMR)日益加剧11,12,使大规模Shigella疫情的防控更加复杂。美国疾病控制与预防中心近期数据显示,2020年美国近46%的Shigella感染病例表现出耐药性13,14,而世界卫生组织已将Shigella列为需要紧急开发新疗法的抗菌药物耐药优先病原体15。
志贺氏菌 感染极易传播 通过 通过摄入被污染的食物或水,或通过直接的人际接触,经粪-口途径传播。 志贺氏菌 已进化为一种高效的人类适应性病原体,仅需10-100个细菌即可引发疾病16小肠转运过程中, 志贺氏菌 暴露于环境信号,例如升高的温度和胆汁17检测到这些信号会诱导转录变化,从而表达毒力因子,增强细菌感染人结肠的能力17,18,19. 志贺氏菌 不会从肠上皮的顶膜表面侵入,而是被滤泡相关上皮内的特化抗原呈递微皱褶细胞(M细胞)摄取后,穿过上皮层进行转运20,21,22经转胞吞作用后, 志贺氏菌 细胞被常驻巨噬细胞吞噬。 志贺氏菌 迅速逃逸吞噬体并触发巨噬细胞死亡,导致促炎性细胞因子的释放5,23,24. 志贺氏菌 然后从基底侧侵入结肠上皮细胞,裂解巨胞饮泡,并在细胞质中建立复制微环境5,25促炎性细胞因子,尤其是白细胞介素-8(IL-8),可招募多形核中性粒细胞(PMNs)至感染部位,从而削弱上皮紧密连接,促进细菌侵入上皮层,加剧基底外侧感染。5中性粒细胞通过破坏受感染的上皮层以控制感染,从而导致杆菌性(血性)痢疾的典型症状。5尽管入侵和细胞内复制机制已被深入表征,但新近研究正在揭示该领域一些重要的新概念 志贺氏菌 感染,包括胃肠道(GI)通过期间的毒力调控17,黏附19,通过屏障通透性改善基底外侧通路26以及营养不良儿童中的无症状携带27.
其能力 志贺氏菌 引起腹泻性疾病的 spp. 仅限于人类和非人灵长类动物(NHP)28. 志贺氏菌 斑马鱼已开发出肠道感染模型29,小鼠30,豚鼠31,兔子21,32,33和猪34,35然而,这些模型系统均无法准确再现人类感染过程中观察到的疾病特征36. 尽管已建立志贺菌病的非人灵长类动物模型用于研究 志贺氏菌 发病机制,这些模型系统实施成本高昂,且需要人为较高的感染剂量,最高可达人类感染剂量的九个数量级37,38,39,40,41,42因此,这种显著的适应性 志贺氏菌 为感染人类宿主的研究需要使用人源性细胞培养物,以构建符合生理相关性的模型,从而对感染过程进行准确解析 志贺氏菌 发病机制
此处详细描述了测量速率的方法 志贺氏菌 HT-29 结肠上皮细胞的黏附、侵袭及胞内复制。利用这些标准化方案,可研究细菌毒力基因和环境信号影响上述每个步骤的分子机制 志贺氏菌 感染可用于深入探究宿主与病原体之间动态相互作用的关系。
访问受限。请登录或开始试用以查看此内容。
方案
1. 试剂与材料的准备
注意:所有体积均基于使用两块6孔板的实验设计。
- TSB 培养基:将 15 g 胰蛋白胨大豆肉汤(TSB,参见 材料表)加入 0.5 L 去离子水(DI)中,高压灭菌。室温保存。
- 胆盐培养基(TSB + BS):配制含 0.4%(w/v)胆盐的 TSB 培养基时,将 0.06 g 胆盐(BS,参见 材料表)重悬于 15 mL 高压灭菌后的 TSB 中。使用 0.22 µm PES 滤器过滤除菌。
注意:胆盐为牛磺胆酸钠与脱氧胆酸钠的 1:1 混合物。请在使用前新鲜配制。 - DMEM + 10%(v/v)胎牛血清(FBS):将 5 mL 胎牛血清(FBS)加入 45 mL 杜氏改良伊格尔培养基(DMEM)中。4 °C 保存。
- DMEM + 庆大霉素:向 50 mL 离心管中加入 50 mL DMEM 和 50 µL 浓度为 50 mg/mL 的庆大霉素(参见 材料表)。
注意:每次实验前需新鲜配制,并在 37 °C 水浴中预热。 - PBS + 1%(v/v)Triton X-100:将 150 µL Triton X-100 加入 15 mL 磷酸盐缓冲液(PBS)中。
注意:每次实验前需新鲜配制,并在 37 °C 水浴中预热。 - 含刚果红指示剂的 TSB 平板(TSB + 刚果红):将 15 g TSB、7.5 g 选择性琼脂和 0.125 g 刚果红染料(参见 材料表)加入 1 L 瓶中,加入 0.5 L 去离子水,高压灭菌。将 10–20 mL 培养基倒入无菌培养皿(100 mm × 15 mm)中,静置凝固。
警告:刚果红具有致癌性且为生殖毒性物质。操作时必须佩戴适当的个人防护装备。更多安全信息请参阅产品安全数据表。
注意:0.5 L 含刚果红的培养基约可制备 20 块平板。平板可提前 2–3 天制备,倒置存放于室温直至使用。如需长期保存,将平板倒置后放入塑料套中,于 4 °C 保存,最长可存放 3 个月。 - DMEM + 10%(v/v)FBS 及 5%(v/v)二甲基亚砜(DMSO):将 42.5 mL DMEM、5 mL FBS 和 2.5 mL DMSO 加入 50 mL 离心管中。4 °C 保存。
2. 细菌的制备
注意:所有 Shigella 的实验室培养和保存方案均改编自 Payne, S. M.43。
警告:志贺氏菌(Shigella)属于危险等级2类病原体44。所有实验操作均须在生物安全二级(BSL-2)环境中进行,并采取额外的安全措施,以减少因志贺氏菌属的感染剂量极低而导致的意外暴露风险。
- 从冻存菌种复苏 Shigella
- 使用无菌涂布棒从冻存管中取出少量冻存菌液,转移至含胰蛋白胨大豆肉汤(TSB)和刚果红的琼脂平板上。
- 将接种环火焰灭菌后冷却。将菌液在平板的第一象限内来回划线接种;再次火焰灭菌接种环并冷却后,从第一象限向第二象限划线;重复此操作,将菌液依次划线至第三和第四象限。
注:也可在每个象限之间使用新的无菌涂布棒进行划线接种。 - 将平板倒置,在 37 °C 下过夜培养。
注:为表达 Shigella 毒力因子以观察刚果红阳性(CR+)表型,必须在 ≥37 °C 条件下培养45。无毒力的菌落呈白色,不具备侵袭性。 - 用封口膜密封平板,并在 4 °C 冷藏保存。
注:细菌菌落在琼脂平板上可保持活性 1–2 周。
- Shigella 液体培养物的过夜培养
- 将 3 mL TSB 培养基分装至无菌的 14 mL 培养管中。
- 使用无菌涂布棒挑取一个孤立良好的红色(CR+)单菌落,并重悬于液体培养基中。
- 在 37 °C、250 转/分钟(rpm)振荡条件下培养过夜(16–18 小时)。
3. HT-29 真核细胞的制备
注意:所有体积均基于使用两块6孔板的实验设计。HT-29细胞系购自美国模式培养物集存库(ATCC)。HT-29细胞的维持方案根据ATCC推荐方案进行调整46。所有培养基在使用前应于37 °C水浴中预热。所有HT-29细胞的维持操作均应在生物安全柜中进行。在培养基中混合或处理HT-29细胞时,应避免产生气泡,以防止pH发生剧烈变化。
- 从冻存液中复苏 HT-29 细胞
- 将 HT-29 细胞冻存管置于 37 °C 水浴中解冻。
注意:确保管盖完全高于水面,以避免污染。解冻时间应少于 2 分钟。 - 细胞完全解冻后立即从水浴中取出冻存管,并用 70% 乙醇进行去污处理。此后所有操作均需采用无菌技术进行。
- 将冻存管中全部内容物转移至含有 9 mL DMEM + 10% FBS 的 15 mL 离心管中,在室温下以 125 × g 离心 5 分钟。
- 将上清液弃入废液容器中,用 10 mL 预热的 DMEM + 10% FBS 重悬细胞沉淀。将重悬的细胞转移至含有 10 mL 预热 DMEM + 10% FBS 的 75 cm2 组织培养瓶(T75)中(总体积为 20 mL)。
- 将细胞置于 37 °C、5% CO2 条件下培养,直至细胞融合度达到 90%(约需 6–7 天)。
注意:融合度通过肉眼估测确定。
- 将 HT-29 细胞冻存管置于 37 °C 水浴中解冻。
- 接种 HT-29 细胞
- 将 20 mL PBS 和 50 mL DMEM + 10% FBS 置于 37 °C 水浴中预热,并将 3 mL 0.25% (w/v) 胰蛋白酶-EDTA 溶液恢复至室温。
- 当 HT-29 细胞(来自步骤 3.1)达到 90% 融合度时,将 T75 培养瓶中的细胞培养基弃入废液容器中。向瓶中加入约 10 mL 预热的 PBS,轻轻晃动以洗涤细胞,随后弃去 PBS。再次用预热 PBS 洗涤一次并弃去。
- 加入 2–3 mL 0.25% (w/v) 胰蛋白酶-EDTA,轻轻晃动使液体覆盖整个培养表面。在 37 °C、5% CO2 条件下孵育 4 分钟。
- 从培养箱中取出培养瓶,轻轻晃动胰蛋白酶-EDTA 溶液,肉眼确认所有细胞均已从表面脱落。
- 立即加入 6 mL 预热的 DMEM + 10% FBS 以终止胰蛋白酶活性。用移液器反复吹打混匀。
- 将全部内容物转移至 15 mL 离心管中,在室温下以 500 × g 离心 5 分钟。
- 小心弃去上清液至废液容器中,用 6 mL 预热的 DMEM + 10% FBS 重悬细胞沉淀。
- 重悬后立即从细胞悬液中部吸取 10 µL HT-29 细胞至 0.2 mL PCR 管中,加入 10 µL 台盼蓝染液并混匀。
- 取 10 µL HT-29 细胞与台盼蓝混合液加入一次性 Countess 细胞计数板(见材料表)。统计活细胞数量并计算细胞活力。
注意:记录样本中细胞数量时,应读取“活细胞”计数项下的数值,而非总细胞数。也可使用血细胞计数板手动完成细胞计数。 - 将重悬的 HT-29 细胞接种至新的 T75 培养瓶或 6 孔板中。
- 对于 T75 培养瓶:
- 轻轻吹打混匀,然后根据以下公式将 2.5 × 10⁶ 个细胞转移至新的 T75 培养瓶中:
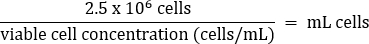
- 加入预热的 DMEM + 10% FBS 培养基至终体积 20 mL(终浓度为 1.25 × 10⁵ 个细胞/mL)。
- 轻轻前后摇动培养瓶,使细胞均匀分布。
- 置于 37 °C、5% CO2 条件下培养,直至细胞融合度达到 80%。
注意:为获得最佳生长状态,建议每约 3 天更换一次 T75 培养瓶中的 DMEM + 10% FBS 培养基。将旧培养基弃入废液容器,向瓶中加入 10 mL 预热 PBS,轻轻晃动后弃去。随后加入 20 mL 新鲜预热的 DMEM + 10% FBS,放回 37 °C、5% CO2 培养箱中。
- 轻轻吹打混匀,然后根据以下公式将 2.5 × 10⁶ 个细胞转移至新的 T75 培养瓶中:
- 对于 6 孔板:
- 轻轻吹打混匀,然后根据以下公式将 5.85 × 10⁶ 个细胞转移至新的 50 mL 圆底离心管中:
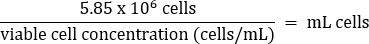
- 加入预热的 DMEM + 10% FBS 培养基至终体积 26 mL(终浓度为 2.25 × 10⁵ 个细胞/mL)。
- 轻轻吹打混匀后,每孔加入 2 mL(含 4.5 × 10⁵ 个细胞)至 6 孔板的各个孔中。
- 通过上下左右轻柔晃动 2–3 次,使细胞在孔内均匀分布。
- 置于 37 °C、5% CO2 条件下培养,直至细胞融合度达到 80%–95%(约需 3–4 天)。
注意:侵袭和细胞内复制实验推荐使用 85% 融合度,而黏附实验推荐使用 90%–95% 融合度。若终浓度约为 1 × 10⁶ 个细胞/孔,细胞在孵育 48 小时后应达到约 85% 融合度。可能需要根据实际情况调整接种细胞数量和孵育时间。
- 轻轻吹打混匀,然后根据以下公式将 5.85 × 10⁶ 个细胞转移至新的 50 mL 圆底离心管中:
- 对于 T75 培养瓶:
- 制备 HT-29 细胞冻存液
- 将 1 mL DMEM + 10% FBS + 5% DMSO 培养基分装至各个冻存管中。
- 从步骤 3.2.7 中取 1 × 10⁶ 个 HT-29 细胞加入每支冻存管中。根据以下公式计算所需细胞体积:
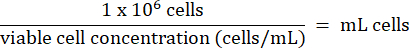
- 将 HT-29 细胞长期保存于液氮气相储存罐中,温度低于 -130 °C。
4. 黏附实验
注意:所有体积均基于使用两块6孔板的实验设计。
- 过夜传代培养 志贺氏菌 培养物 通过 1:50 稀释至新鲜培养基中。
- 涡旋,然后加入 100 µL 将每种过夜培养物取等量接种至装有5 mL新鲜TSB或TSB + BS的合适大小的培养管中。
注意:将培养体积限制在 <培养瓶或试管体积的20%,以确保适当的通气。 - 孵育于 37 °C 以250 rpm振荡培养,直至细胞达到光密度(OD6000.7(对数生长中期) 志贺氏菌 生长);约2-2.5小时。
注意:在传代过程中,分装 50 mL DMEM 以及足量的 PBS 用于所有洗涤步骤,并置于 37 °C 水浴。让培养基达到 37 °C 使用前
- 涡旋,然后加入 100 µL 将每种过夜培养物取等量接种至装有5 mL新鲜TSB或TSB + BS的合适大小的培养管中。
- 转移 2 x 10⁸ 菌落形成单位(CFUs)传代培养 志贺氏菌 至各自的 2 mL 微量离心管中。
注意:2 x 10⁸ 菌落形成单位(CFUs)对应于光密度(OD)为一定值时约1 mL的细菌细胞600 0.7。使用OD600 根据每台分光光度计的校准情况,将读数换算为近似的CFU/mL。 - 洗涤每一份 志贺氏菌 用 PBS 洗涤 2 次。
- 通过离心沉淀细胞,离心条件为 17,000 x g 室温孵育2分钟。吸除上清液,加入1 mL预热的PBS,充分重悬沉淀,轻轻吹打样品8–10次,直至混合液完全均匀。
- 重复步骤 4.3.1 一次。
- 通过离心沉淀细胞,离心条件为 17,000 x g 室温孵育2分钟,吸除上清液,将沉淀重悬于2 mL预热的DMEM中。
注意:重悬细菌的最终浓度为 1 x 10⁸ CFU/mL
- 涡旋,然后加入 1 mL(1 x 10⁸ 重悬的菌落形成单位(CFUs) 志贺氏菌 向6孔板中已制备好的HT-29结肠上皮单层细胞的每个孔中加入(来自步骤3.2.10.2)。
注意:感染通常以感染复数(MOI;细菌与上皮细胞的比例)为100的条件进行。若需测试不同的MOI,可稀释重悬的 志贺氏菌 在温热的DMEM中将细菌稀释至所需浓度,然后向HT-29单层细胞中加入1 mL稀释后的细菌。例如,若要测试MOI为10的感染复数,可通过加入相应体积的培养基将细菌进行1:10稀释 150 µL 1 × 10⁸ 将细菌以 CFU/mL 浓度加入 1.35 mL 温热的 DMEM 中,然后加入 1 mL(1 × 10⁷ CFUs)与HT-29细胞的相互作用。 - 将6孔板置于培养箱中孵育 37 °C 含5% CO2 3小时。
- 孵育期间,测定细菌感染滴度。
- 制备重悬样品的10倍系列稀释液 志贺氏菌 将细胞(来自步骤 4.3.3)转入 PBS 中。
- 培养皿 100 µL 1 × 10 的-5 和 1 × 10⁻⁶ 稀释后涂布于含刚果红的TSB平板,37°C过夜培养 37 °C.
注意:铺板 100 µL 来自 1 × 10⁻⁵ 和 1 × 10⁻⁶ 稀释对应于1 x 10的最终稀释倍数-6 和 1 × 10⁻⁷分别。
- 孵育后,用 PBS 洗涤单层细胞 4–5 次。
- 吸出每孔中的培养基。
注意:从6孔板中吸取培养基时,应将吸头沿孔的底部移动,尽量避免接触HT-29细胞。 - 向每个孔中加入 1 mL 温热的 PBS,轻轻洗涤。
注意:用 PBS 轻柔洗涤 6 孔板单层细胞时,应在实验台面上上下、左右移动培养板。以圆周运动方式洗涤或从实验台面拿起培养板可能导致细胞从塑料表面机械性脱落。 - 重复步骤 4.7.1 和 4.7.2,共额外进行 4 次。
- 吸出每孔中的培养基。
- 吸除 PBS,每孔加入 1 mL PBS + 1% Triton X-100 裂解 HT-29 细胞。
- 在6孔板中孵育 37 °C 5 分钟。
- 使用细胞刮棒或弯头移液器吸头将裂解的细胞从孔底刮下,并将全部1 mL液体转移至新的1.7 mL微量离心管中。
- 确定与细胞相关的细菌数量。
- 涡旋振荡每个试管(来自步骤 4.10)至少 30 秒,以进一步分散 志贺氏菌 来自裂解的真核细胞。
- 将裂解液用 PBS 进行10倍系列稀释。
- 培养皿 100 µL 1 × 10-2,1 × 10-3,以及 1 × 10⁻⁴ 稀释后涂布于含刚果红的TSB平板,37°C过夜培养 37 °C.
注意:包被 100 µL 来自 1 × 10-2,1 × 10-3,以及 1 × 10⁻⁴ 稀释对应于1 x 10的最终稀释倍数-3,1 × 10⁻⁴,以及 1 × 10⁻⁵分别。
5. 侵袭实验
注意:所有体积均基于使用两块6孔板的实验设计。
- 过夜传代培养 志贺氏菌 培养物 通过 1:50 稀释至新鲜培养基中。
- 涡旋,然后加入 100 µL 将每种过夜培养物取等量接种至装有5 mL新鲜TSB或TSB + BS的合适大小的培养管中。
注意:将培养体积限制为 <培养瓶或试管体积的20%,以确保适当的通气。 - 孵育于 37 °C 以250 rpm振荡培养,直至细胞达到指定OD值600 0.7(对数生长中期) 志贺氏菌 生长);约2-2.5小时。
注意:传代过程中,分装 50 mL DMEM + 50 mg/mL 庆大霉素,并准备足量 PBS 用于所有洗涤步骤,置于 37 °C 水浴。让培养基达到 37 °C 使用前
- 涡旋,然后加入 100 µL 将每种过夜培养物取等量接种至装有5 mL新鲜TSB或TSB + BS的合适大小的培养管中。
- 转移 2 x 10⁸ CFUs 传代培养 志贺氏菌 至各自的2 mL微量离心管中。
注意:2 x 10⁸ CFUs 对应于约 1 mL 的细菌细胞,其 OD600 0.7。使用OD600 根据每台分光光度计的校准情况,将读数换算为近似的CFU/mL。 - 洗涤 志贺氏菌 用 PBS 洗涤样品 1 次。
- 通过离心在17,000 x g下收集细胞沉淀 g 室温孵育2分钟。吸除上清液,加入1 mL预热的PBS,充分重悬沉淀,轻轻吹打样品8–10次,直至混合液完全均匀。
- 重复步骤 5.3.1 一次。
- 通过离心沉淀细胞,离心条件为 17,000 x g 室温孵育2分钟,吸除上清液,将沉淀重悬于2 mL预热的DMEM中。
注意:重悬细菌的最终浓度为 1 x 10⁸ CFU/mL
- 涡旋,然后加入 1 mL(1 x 10⁸ 重悬的菌落形成单位(CFUs) 志贺氏菌 向6孔板中已制备好的HT-29结肠上皮单层细胞(来自步骤3.2.10.2)每孔加入1 mL DMEM。
注意:感染通常以感染复数(MOI;细菌与上皮细胞的比例)为100的条件进行。若需测试不同的MOI,可稀释重悬的 志贺氏菌 在DMEM中稀释至所需浓度,然后将1 mL稀释后的细菌加入HT-29单层细胞中。例如,若要测试MOI为10的感染复数,可通过加入相应体积将细菌稀释1:10 150 µL 1 × 10⁸ CFU/mL 细菌加入到 1.35 mL DMEM 中,然后加入 1 mL(1 × 10⁷ 菌落形成单位(CFUs)对 HT-29 细胞的作用。 - 为促进细菌与HT-29细胞的接触,将6孔板在2,000 x g条件下离心 g 室温下孵育10分钟 37 °C 如果温度设置可调节。
注意:离心可促进细菌与HT-29细胞的接触,从而绕过对黏附因子的需求,使细菌能够快速侵入细胞。 - 在6孔板中孵育 37 °C 含5% CO2 45 分钟。
- 孵育期间,测定细菌感染滴度。
- 制备重悬样品的10倍系列稀释液 志贺氏菌 细胞(来自步骤 5.3.3)加入 PBS 中。
- 培养皿 100 µL 1 × 10⁻⁵ 和 1 × 10⁻⁶ 稀释后涂布于含刚果红的TSB平板,37°C过夜培养 37 °C.
注意:铺板 100 µL 来自 1 × 10⁻⁵ 和 1 × 10⁻⁶ 稀释对应于1 x 10的最终稀释倍数-6 和 1 × 10⁻⁷分别。
- 用 1 mL PBS 将感染的 HT-29 细胞彻底洗涤 3 次。
- 吸出每孔中的培养基。
注意:从6孔板中吸取培养基时,应将吸头沿孔的底部移动,尽量避免接触HT-29细胞。 - 向每个孔中加入 1 mL 温热的 PBS,轻轻洗涤。
注意:用 PBS 轻柔洗涤 6 孔板单层细胞时,应在实验台面上上下、左右移动培养板。以圆周运动方式洗涤或从实验台面拿起培养板可能导致细胞因机械作用从塑料表面脱落。 - 重复步骤 5.8.1 和 5.8.2,额外进行 2 次。
- 吸出每孔中的培养基。
- 吸除 PBS,然后加入 2 mL 含补充成分的温热 DMEM 50 µg/mL 每孔加入庆大霉素,37℃孵育30分钟 37 °C 含5% CO2.
- 用 1 mL PBS 将感染的 HT-29 细胞彻底洗涤 3 次。
- 重复步骤5.8的洗涤操作。
- 吸除 PBS,然后加入 2 mL 温热的 DMEM,该 DMEM 添加有 50 µg/mL 每孔加入庆大霉素,37℃孵育60分钟 37 °C 含5% CO2.
- 用 1 mL PBS 将感染的 HT-29 细胞彻底洗涤 3 次。
- 重复步骤5.8的洗涤操作。
- 吸除 PBS,每孔加入 1 mL PBS + 1% Triton X-100 裂解 HT-29 细胞。
- 在6孔板中孵育 37 °C 5 分钟。
- 使用细胞刮棒或弯头移液器吸头将裂解的细胞从孔底刮下,并将全部1 mL液体转移至新的1.7 mL微量离心管中。
- 确定细胞内细菌数量。
- 涡旋振荡每个试管(来自步骤 5.15)至少 30 秒,以进一步分散 志贺氏菌 来自裂解的真核细胞。
- 将裂解液用 PBS 进行10倍系列稀释。
- 培养皿 100 µL 1 × 10⁻² 和 1 × 10⁻³ 稀释后涂布于含刚果红的TSB平板,37℃过夜培养 37 °C.
注意:铺板 100 µL 来自 1 × 10⁻² 和 1 × 10⁻³ 稀释对应于1 x 10的最终稀释倍数-3 和 1 × 10⁻⁴分别。
6. 细胞内复制实验
注意:所有体积均基于使用两块6孔板的实验设计。
- 过夜传代培养 志贺氏菌 培养物 通过 1:50 稀释至新鲜培养基中。
- 涡旋,然后加入 100 µL 将每种过夜培养物取等量接种至装有5 mL新鲜TSB或TSB + BS的合适大小的培养管中。
注意:将培养体积限制为 <培养瓶或试管体积的20%,以确保适当的通气。 - 孵育于 37 °C 以250 rpm振荡培养,直至细胞达到指定OD值600 0.7(对数生长中期) 志贺氏菌 生长);约2-2.5小时。
注意:在传代过程中,分装 50 mL DMEM + 50 mg/mL 庆大霉素,并准备足量 PBS 用于所有洗涤步骤,并置于 37 °C 水浴。让培养基达到 37 °C 使用前
- 涡旋,然后加入 100 µL 将每种过夜培养物取等量接种至装有5 mL新鲜TSB或TSB + BS的合适大小的培养管中。
- 转移 2 x 10⁸ CFUs 传代培养 志贺氏菌 至各自的2 mL微量离心管中。
注意:2 x 10⁸ 菌落形成单位(CFUs)对应于光密度(OD)为一定值时约1 mL的细菌细胞600 0.7。使用OD600 根据每台分光光度计的校准情况,将读数换算为近似的CFU/mL。 - 洗涤 志贺氏菌 用 PBS 洗涤样品 1 次。
- 通过离心沉淀细胞,离心条件为 17,000 x g 室温孵育2分钟。吸除上清液,加入1 mL预热的PBS,充分重悬沉淀,轻轻吹打样品8–10次,直至混合液完全均匀。
- 重复步骤 6.3.1 一次。
- 通过离心沉淀细胞,离心条件为 17,000 x g 室温孵育2分钟,吸除上清液,将沉淀重悬于2 mL预热的DMEM中。
注意:重悬细菌的最终浓度为 1 x 10⁸ CFU/mL
- 涡旋,然后加入 1 mL(1 x 10⁸ 重悬后菌落形成单位(CFUs) 志贺氏菌 向6孔板中已制备好的HT-29结肠上皮单层细胞(来自步骤3.2.10.2)每孔加入1 mL DMEM。
注意:感染通常以感染复数(MOI;细菌与上皮细胞的比例)为100的条件进行。若需测试不同的MOI,可稀释重悬的 志贺氏菌 在DMEM中将细菌稀释至所需浓度,然后向HT-29单层细胞中加入1 mL稀释后的细菌。例如,若要测试MOI为10的感染复数,可通过加入1:10比例的稀释液将细菌稀释 150 µL 1 × 10⁸ 将细菌以 CFU/mL 浓度加入 1.35 mL DMEM 中,然后加入 1 mL(1 × 10⁷ 菌落形成单位(CFUs)与HT-29细胞的共培养。 - 为促进细菌与HT-29细胞的接触,将6孔板在2,000 x g 室温下孵育10分钟 37 °C 如果温度设置可调节。
注意:离心可促进细菌与HT-29细胞的接触,从而绕过对黏附因子的需求,使细菌能够快速侵入细胞。 - 将6孔板置于培养箱中孵育 37 °C 含5% CO2 45 分钟。
- 孵育期间,测定细菌感染滴度。
- 制备重悬液的10倍系列稀释液 志贺氏菌 细胞(来自步骤 6.3.3)加入 PBS 中。
- 培养皿 100 µL 1 × 10⁻⁵ 和 1 × 10⁻⁶ 稀释后涂布于含刚果红的TSB平板,37°C过夜培养 37 °C.
注意:铺板 100 µL 来自 1 × 10⁻⁵ 和 1 × 10⁻⁶ 稀释对应于1 x 10的最终稀释倍数-6 和 1 × 10⁻⁷分别。
- 用 1 mL PBS 将感染的 HT-29 细胞充分洗涤 3 次。
- 吸出每孔中的培养基。
注意:从6孔板中吸取培养基时,应将吸头沿孔的底部移动,尽量避免接触HT-29细胞。 - 向每个孔中加入 1 mL 温热的 PBS,轻轻洗涤。
注意:用 PBS 轻柔洗涤 6 孔板单层细胞时,应在实验台面上上下、左右移动培养板。以圆形轨迹晃动培养板和/或将培养板移离实验台面,可能导致细胞从塑料表面因机械作用而脱落。 - 重复步骤 6.8.1 和 6.8.2,额外进行 2 次。
- 吸出每孔中的培养基。
- 吸除 PBS,然后加入 2 mL 含补充成分的温热 DMEM 50 µg/mL 每孔加入庆大霉素,37℃孵育30分钟 37 °C 含5% CO2.
- 用 1 mL PBS 将感染的 HT-29 细胞彻底洗涤 3 次。
- 重复步骤6.8的洗涤操作。
- 吸除 PBS,然后加入 2 mL 温热的 DMEM 50 µg/mL 将庆大霉素加入6孔板的每孔中,并在 37 °C 含5% CO2 在所需时间内孵育,以允许细胞内复制(最长24小时)。
- 用 1 mL PBS 将细胞充分洗涤 2 次。
- 重复步骤6.8的洗涤操作。
- 吸除 PBS,每孔加入 1 mL PBS + 1% Triton X-100 裂解 HT-29 细胞。
- 将6孔板置于培养箱中孵育 37 °C 5 分钟。
- 使用细胞刮棒或弯头移液器吸头将裂解的细胞从孔底刮下,并将全部1 mL液体转移至新的1.7 mL微量离心管中。
- 确定细胞内细菌数量。
- 涡旋振荡每个试管(来自步骤 6.15)至少 30 秒,以进一步分散 志贺氏菌 来自裂解的真核细胞。
- 将裂解液用 PBS 进行10倍系列稀释。
- 培养皿 100 µL 1 × 10-2,1 × 10-3,以及 1 × 10⁻⁴ 稀释后涂布于含刚果红的TSB平板,37°C过夜培养 37 °C.
注意:铺板 100 µL 来自 1 × 10-2,1 × 10-3,以及 1 × 10⁻⁴ 稀释对应于1 x 10的最终稀释倍数-3,1 × 10⁻⁴,以及 1 × 10⁻⁵分别。
访问受限。请登录或开始试用以查看此内容。
结果
通过黏附、侵袭和细胞内复制实验,比较了S. flexneri 2457T野生型(WT)与S. flexneri ΔVF(ΔVF)突变株的特性,后者被认为对Shigella的毒力具有负调控作用。由于Shigella利用胆盐作为调控毒力的信号分子17,18,47,实验在细菌于TSB培养基中继代培养后进行,同时设置了添加0.4%(w/v)胆盐的TSB培养基组18。继代培养过程中暴露于胆盐被视为一种预处理,用以模拟细菌在进入结肠感染前穿越小肠的生理过程17,18,47。图1分析了<...
访问受限。请登录或开始试用以查看此内容。
讨论
本方案描述了一组三种标准化的实验方法,用于研究Shigella对肠上皮细胞的黏附、侵袭以及胞内复制。尽管这些方法仅是对经典庆大霉素保护实验的改良版本,最初用于研究多种细菌病原体在宿主细胞内的侵袭和胞内复制过程49,50,51,但在研究Shigella时必须采用特殊的实验条件和考虑因素。
志贺氏菌 是兼性厌氧菌,在有氧条件下,于37 °C的丰富培养基中生长最佳43在进行这些检测以探究不同环境信号或代谢物对...的影响时 志贺氏菌 感染时,建议培养 志贺氏菌 在丰富培养基中过夜培养,然后转接至限定或补充培养基中,于感染前培养至对数生长中期。毒力基因的最大表达发生在对数生长期。52,
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
作者的研究得到了马萨诸塞州总医院儿科系、研究执行委员会临时支持基金(ISF)项目2022A009041、美国国家过敏与传染病研究所资助R21AI146405以及美国国家糖尿病、消化与肾脏疾病研究所资助哈佛营养与肥胖研究中心(NORCH)2P30DK040561-26的支持。资助方在研究设计、数据收集与分析、发表决定或稿件撰写过程中均未发挥任何作用。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.22 μm PES 滤膜 | Millipore-Sigma | SCGP00525 | 无菌聚醚砜滤膜,用于过滤灭菌最多 50 mL 培养基 |
| 14 mL 培养管 | Corning | 352059 | 17 mm × 100 mm 聚丙烯带盖试管 |
| 50 mL 锥形离心管 | Corning | 430829 | 50 mL 透明聚丙烯圆锥底离心管,带防漏盖 |
| 6 孔组织培养板 | Corning | 3516 | 经表面处理,利于细胞最佳贴附 |
| 胆盐 | Sigma-Aldrich | B8756 | 胆酸与脱氧胆酸按 1:1 比例混合 |
| 刚果红染料 | Sigma-Aldrich | C6277 | 一种基于联苯胺的阴离子偶氮染料,>85% 纯度 |
| Countess 细胞计数板 | Invitrogen | C10283 | 与 Countess 自动细胞计数仪配合使用 |
| 二甲基亚砜(DMSO) | Sigma-Aldrich | D8418 | 一种高度极性的有机试剂 |
| Dulbecco’s 改良伊格尔培养基(DMEM) | Gibco | 10569-010 | DMEM 添加了高浓度葡萄糖、丙酮酸钠、GlutaMAX 和酚红 |
| 胎牛血清(FBS) | Sigma-Aldrich | F4135 | 经热灭活处理,无菌 |
| 庆大霉素 | Sigma-Aldrich | G3632 | 储存液浓度为 50 mg/mL |
| HT-29 细胞系 | ATCC | HTB-38 | 腺癌细胞系,来源于结直肠 |
| 石蜡膜 | Bemis | PM999 | 实验室封口膜 |
| 培养皿 | Thermo Fisher Scientific | FB0875713 | 100 mm × 15 mm 培养皿,用于固体培养基 |
| 磷酸盐缓冲液(PBS) | Thermo Fisher Scientific | 10010049 | 1× 浓度;pH 7.4 |
| 琼脂 | Invitrogen | 30391023 | 从红藻细胞壁提取的多糖混合物,用于制备细菌培养平板 |
| T75 培养瓶 | Corning | 430641U | 组织培养瓶 |
| Triton X-100 | Sigma-Aldrich | T8787 | 一种常用的非离子型表面活性剂和乳化剂 |
| 台盼蓝染色液 | Invitrogen | T10282 | 用于检测死亡的组织培养细胞;只有活细胞能够排斥该染料 |
| 胰蛋白酶-EDTA | Gibco | 25200-056 | 用于细胞解离,适用于细胞系的维持与传代 |
| 胰蛋白胨大豆肉汤(TSB) | Sigma-Aldrich | T8907 | 细菌生长培养基 |
参考文献
- Karambizi, N. U., McMahan, C. S., Blue, C. N., Temesvari, L. A. Global estimated Disability-Adjusted Life-Years (DALYs) of diarrheal diseases: A systematic analysis of data from 28 years of the global burden of disease study. PloS one. 16 (10), e0259077(2021).
- WHO. WHO methods and data sources for country-level causes of death 2000-2016. World Health Organization. , Geneva. (2018).
- Kotloff, K. L. Shigella infection in children and adults: a formidable foe. Lancet Glob Health. 5 (12), e1166-e1167 (2017).
- Kotloff, K. L., et al. Burden and aetiology of diarrhoeal disease in infants and young children in developing countries (the Global Enteric Multicenter Study, GEMS): A prospective, case-control study. Lancet. 382 (9888), 209-222 (2013).
- Schroeder, G. N., Hilbi, H. Molecular pathogenesis of Shigella spp.: Controlling host cell signaling, invasion, and death by type III secretion. Clin Microbiol Rev. 21 (1), 134-156 (2008).
- Arvelo, W., et al. Transmission risk factors and treatment of pediatric shigellosis during a large daycare center-associated outbreak of multidrug resistant shigella sonnei: Implications for the management of shigellosis outbreaks among children. Pediatr Infect Dis J. 28 (11), 976-980 (2009).
- Kozyreva, V. K., et al. Recent outbreaks of Shigellosis in California caused by two distinct populations of Shigella sonnei with either increased virulence or fluoroquinolone resistance. mSphere. 1 (6), 1-18 (2016).
- Bowen, A., et al. Importation and domestic transmission of Shigella sonnei resistant to ciprofloxacin - United States, May 2014-February 2015. MMWR Morb Mortal Wkly Rep. 64 (12), 318-320 (2015).
- Tansarli, G. S., et al. Genomic reconstruction and directed interventions in a multidrug-resistant Shigellosis outbreak in Seattle, WA, USA: a genomic surveillance study. Lancet. 3099 (22), 1-11 (2023).
- Barry, E. M., et al. Progress and pitfalls in Shigella vaccine research. Nat Rev Gastroenterol Hepatol. 10 (4), 245-255 (2013).
- Increase in Extensively Drug-Resistant Shigellosis in the United States. CDC Health Alert Network. Centers for Disease Control and Prevention. , Available from: https://emergency.cdc.gov/han/2023/han00486.asp?ACSTrackingID=USCDC_511-DM100260&ACSTrackingLabel=HAN%20486%20-%20General%20Public&deliveryName=USCDC_511-DM100260 (2023).
- Shiferaw, B., et al. Antimicrobial susceptibility patterns of Shigella isolates in Foodborne Diseases Active Surveillance Network (FoodNet) sites, 2000-2010. Clin Infect Dis. 54, S458-S463 (2012).
- Centers for Disease Control and Prevention. COVID-19: U.S. Impact on Antimicrobial Resistance, Special Report 2022. Atlanta, GA: U.S. Department of Health and Human Services. CDC. , (2022).
- Centers for Disease Control and Prevention. Antibiotic resistance threats in the United States, 2019. CDC. 10 (1), Atlanta, Georgia. (2019).
- WHO. Prioritization of pathogens to guide discovery, research and development of new antibiotics for drug-resistant bacterial infections, including tuberculosis. WHO. , Geneva. (2017).
- DuPont, H. L., Levine, M. M., Hornick, R. B., Formal, S. B. Inoculum size in shigellosis and implications for expected mode of transmission. J Infect Dis. 159 (6), 1126-1128 (1989).
- Nickerson, K. P., et al. Analysis of Shigella flexneri resistance, biofilm formation, and transcriptional profile in response to bile salts. Infect Immun. 85 (6), 1-18 (2017).
- Faherty, C. S., Redman, J. C., Rasko, D. A. Shigella flexneri effectors OspE1 and OspE2 mediate induced adherence to the colonic epithelium following bile salts exposure. Mol Microbiol. 85 (1), 107-121 (2012).
- Chanin, R. B., et al. Shigella flexneri adherence factor expression in in vivo-like conditions. mSphere. 4 (6), e00751(2019).
- Baranov, V., Hammarström, S. Carcinoembryonic antigen (CEA) and CEA-related cell adhesion molecule 1 (CEACAM1), apically expressed on human colonic M cells, are potential receptors for microbial adhesion. Histochem Cell Biol. 121 (2), 83-89 (2004).
- Wassef, J. S., Keren, D. F., Mailloux, J. L. Role of M cells in initial antigen uptake and in ulcer formation in the rabbit intestinal loop model of shigellosis. Infect Immun. 57 (3), 858-863 (1989).
- Sansonetti, P. J., Arondel, J., Cantey, J. R., Prévost, M. C., Huerre, M. Infection of rabbit Peyer's patches by Shigella flexneri: Effect of adhesive or invasive bacterial phenotypes on follicle-associated epithelium. Infect Immun. 64 (7), 2752-2764 (1996).
- Sansonetti, P. J., et al. Caspase-1 activation of IL-1beta and IL-18 are essential for Shigella flexneri-induced inflammation. Immunity. 12 (5), 581-590 (2000).
- Zychlinsky, A., Fitting, C., Cavaillon, J. M., Sansonetti, P. J. Interleukin 1 is released by murine macrophages during apoptosis induced by Shigella flexneri. J Clin Invest. 94 (3), 1328-1332 (1994).
- Sansonetti, P. J., Ryter, A., Clerc, P., Maurelli, A. T., Mounier, J. Multiplication of Shigella flexneri within HeLa cells: lysis of the phagocytic vacuole and plasmid-mediated contact hemolysis. Infect Immun. 51 (2), 461-469 (1986).
- Maldonado-Contreras, A., et al. Shigella depends on SepA to destabilize the intestinal epithelial integrity via cofilin activation. Gut Microbes. 8 (6), 544-560 (2017).
- Collard, J. -M., et al. High prevalence of small intestine bacteria overgrowth and asymptomatic carriage of enteric pathogens in stunted children in Antananarivo, Madagascar. PLoS Negl Trop Dis. 16 (5), e0009849(2022).
- Mattock, E., Blocker, A. J. How do the virulence factors of shigella work together to cause disease. Front Cell Infect Microbiol. 7, 1-24 (2017).
- Mostowy, S., et al. The zebrafish as a new model for the in vivo study of Shigella flexneri interaction with phagocytes and bacterial autophagy. PLoS Pathog. 9 (9), e1003588(2013).
- Martinez-Becerra, F. J., et al. Parenteral immunization with IpaB/IpaD protects mice against lethal pulmonary infection by Shigella. Vaccine. 31 (24), 2667-2672 (2013).
- Shim, D. -H., et al. New animal model of shigellosis in the Guinea pig: its usefulness for protective efficacy studies. J Immunol. 178 (4), Baltimore, Md. 2476-2482 (2007).
- Marteyn, B., et al. Modulation of Shigella virulence in response to available oxygen in vivo. Nature. 465 (7296), 355-358 (2010).
- West, N. P., et al. Optimization of virulence functions through glucosylation of Shigella LPS. Science. 307 (5713), 1313-1317 (2005).
- Maurelli, A. T., et al. Shigella infection as observed in the experimentally inoculated domestic pig, Sus scrofa domestica. Microbial Pathog. 25 (4), 189-196 (1998).
- Jeong, K. -I., Zhang, Q., Nunnari, J., Tzipori, S. A piglet model of acute gastroenteritis induced by Shigella dysenteriae Type 1. J Infect Dis. 201 (6), 903-911 (2010).
- Kim, Y. -J., Yeo, S. -G., Park, J. -H., Ko, H. -J. Shigella vaccine development: prospective animal models and current status. Curr Pharm Biotechnol. 14 (10), 903-912 (2013).
- Kent, T. H., Formal, S. B., LaBrec, E. H., Sprinz, H., Maenza, R. M. Gastric shigellosis in rhesus monkeys. Am J Pathol. 51 (2), 259-267 (1967).
- Shipley, S. T., et al. A challenge model for Shigella dysenteriae 1 in cynomolgus monkeys (Macaca fascicularis). Comp Med. 60 (1), 54-61 (2010).
- Higgins, R., Sauvageau, R., Bonin, P. Shigella flexneri Type 2 Infection in captive nonhuman primates. Can Vet J. 26 (12), 402-403 (1985).
- Oaks, E. V., Hale, T. L., Formal, S. B. Serum immune response to Shigella protein antigens in rhesus monkeys and humans infected with Shigella spp. Infect Immun. 53 (1), 57-63 (1986).
- Formal, S. B., et al. Protection of monkeys against experimental shigellosis with a living attenuated oral polyvalent dysentery vaccine. J Bacteriol. 92 (1), 17-22 (1966).
- Levine, M. M., Kotloff, K. L., Barry, E. M., Pasetti, M. F., Sztein, M. B. Clinical trials of Shigella vaccines: two steps forward and one step back on a long, hard road. Nat Rev Microbiol. 5 (7), 540-553 (2007).
- Payne, S. M. Laboratory cultivation and storage of Shigella. Curr Protoc Microbiol. 55 (1), 93(2019).
- NIH Guidelines. NIH guidelines for research involving recombinant or synthetic nucleic acid molecules. NIH Guidelines. 2, 142(2019).
- Maurelli, A. T., Blackmon, B., Curtiss, R. Loss of pigmentation in Shigella flexneri 2a is correlated with loss of virulence and virulence-associated plasmid. Infect Immun. 43 (1), 397-401 (1984).
- HT-29 cell line product sheet. ATCC. , Available from: https://www.atcc.org/products/htb-38 1-6 (2023).
- Sistrunk, J. R., Nickerson, K. P., Chanin, R. B., Rasko, D. A., Faherty, C. S. Survival of the fittest: How bacterial pathogens utilize bile to enhance infection. Clin Microbiol Rev. 29 (4), 819-836 (2016).
- Stensrud, K. F., et al. Deoxycholate interacts with IpaD of Shigella flexneri in inducing the recruitment of IpaB to the type III secretion apparatus needle tip. J Biol Chem. 283 (27), 18646-18654 (2008).
- Mandell, G. L. Interaction of intraleukocytic bacteria and antibiotics. J Clin Invest. 52 (7), 1673-1679 (1973).
- Elsinghorst, E. A. Measurement of invasion by gentamicin resistance. Methods Enzymo. 236 (1979), 405-420 (1994).
- Elsinghorst, E. A., Weitz, J. A. Epithelial cell invasion and adherence directed by the enterotoxigenic Escherichia coli tib locus is associated with a 104-kilodalton outer membrane protein. Infect Immun. 62 (8), 3463-3471 (1994).
- Dorman, C. J., McKenna, S., Beloin, C. Regulation of virulence gene expression in Shigella flexneri, a facultative intracellular pathogen. Int J Med Microbiol. 291 (2), 89-96 (2001).
- Porter, M. E., Dorman, C. J. Positive regulation of Shigella flexneri virulence genes by integration host factor. J Bacteriol. 179 (21), 6537-6550 (1997).
- Maurelli, A. T., Blackmon, B., Curtiss, R. Temperature-dependent expression of virulence genes in Shigella species. Infect Immun. 43 (1), 195-201 (1984).
- Schuch, R., Maurelli, A. T. Virulence plasmid instability in Shigella flexneri 2a is induced by virulence gene expression. Infect Immun. 65 (9), 3686-3692 (1997).
- Formal, S. B., Hale, T. L., Sansonetti, P. J. Invasive enteric pathogens. Rev Infect Dis. 5, S702-S707 (1983).
- Pál, T., Hale, T. L. Plasmid-associated adherence of Shigella flexneri in a HeLa cell model. Infect Immun. 57 (8), 2580-2582 (1989).
- Noben, M., et al. Human intestinal epithelium in a dish: Current models for research into gastrointestinal pathophysiology. United European Gastroenterol J. 5 (8), 1073-1081 (2017).
- Liévin-Le Moal, V., Servin, A. L. Pathogenesis of human enterovirulent bacteria: lessons from cultured, fully differentiated human colon cancer cell lines. Microbiol Mol Biol Rev R. 77 (3), 380-439 (2013).
- Mitchell, D. M., Ball, J. M. Characterization of a spontaneously polarizing HT-29 cell line, HT-29/cl.f8. In Vitro Cell Dev Biol - Anim. 40 (10), 297-302 (2004).
- Gagnon, M., Zihler Berner, A., Chervet, N., Chassard, C., Lacroix, C. Comparison of the Caco-2, HT-29 and the mucus-secreting HT29-MTX intestinal cell models to investigate Salmonella adhesion and invasion. J Microbiol Methods. 94 (3), 274-279 (2013).
- Koestler, B. J., et al. Human intestinal enteroids as a model system of Shigella pathogenesis. Infect Immun. 87 (4), 00733(2019).
- Ranganathan, S., et al. Evaluating Shigella flexneri pathogenesis in the human enteroid model. Infect Immun. 87 (4), (2019).
- Nickerson, K. P., et al. A versatile human intestinal organoid-derived epithelial monolayer model for the study of enteric pathogens. Microbiol Spectr. 9 (1), 1-17 (2021).
- Perlman, M., Senger, S., Verma, S., Carey, J., Faherty, C. S. A foundational approach to culture and analyze malnourished organoids. Gut Microbes. 15 (2), 2248713(2023).
- Pope, L. M., Reed, K. E., Payne, S. M. Increased protein secretion and adherence to HeLa cells by Shigella spp. following growth in the presence of bile salts. Infect Immun. 63 (9), 3642-3648 (1995).
- Faherty, C. S., et al. The synthesis of OspD3 (ShET2) in Shigella flexneri is independent of OspC1. Gut Microbes. 7 (6), 486-502 (2016).
- Ridlon, J. M., Kang, D. -J., Hylemon, P. B. Bile salt biotransformations by human intestinal bacteria. J Lipid Res. 47 (2), 241-259 (2006).
- Köseoğlu, V. K., Hall, C. P., Rodríguez-López, E. M., Agaisse, H. The Autotransporter IcsA promotes Shigella flexneri biofilm formation in the presence of bile salts. Infect Immun. 87 (7), 1-14 (2019).
访问受限。请登录或开始试用以查看此内容。
重印与许可
