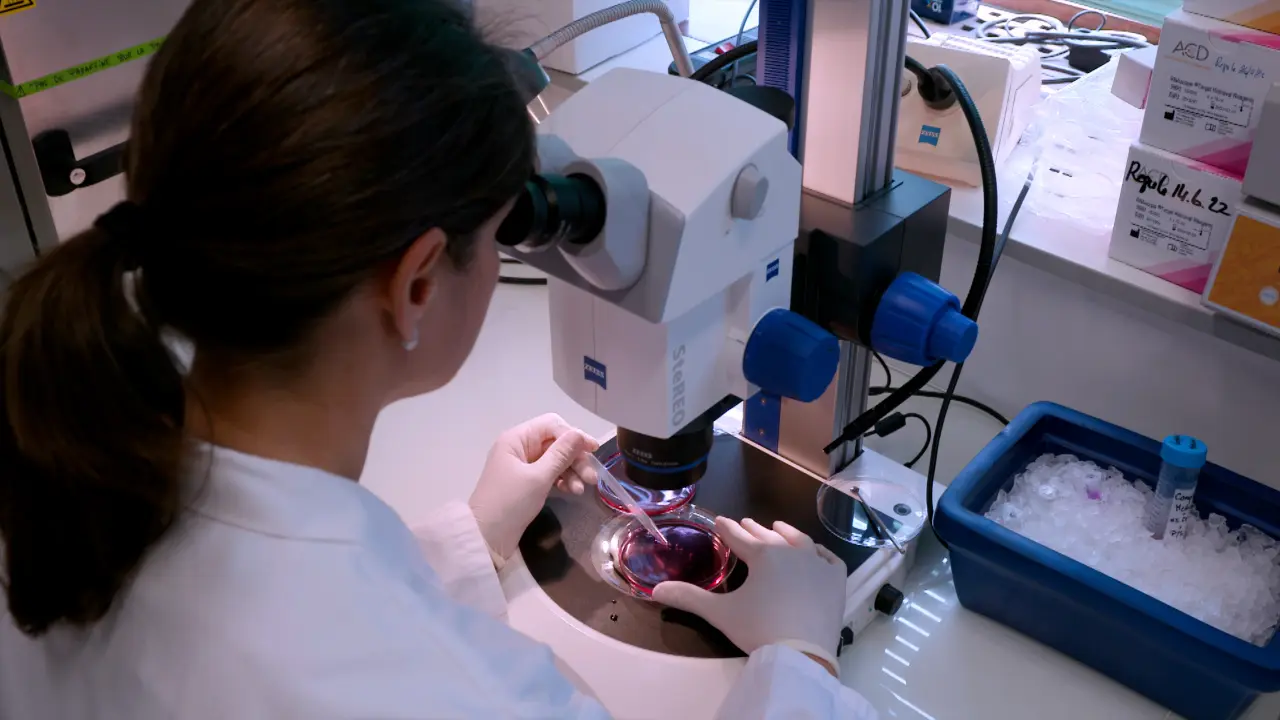
여기에서 우리는 세포핵 준비를 설명하는 프로토콜을 제시합니다. 심장 조직을 단일 세포로 미세 해부 및 효소 해리한 후, 전구 세포를 동결한 다음, 순수 생존 세포를 분리하여 단일 핵 RNA 시퀀싱 및 고처리량 시퀀싱 분석을 통한 전이효소 접근 가능한 염색질에 대한 단일 핵 분석에 사용했습니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
단일 세포 분해능에서 후성유전체 및 유전자 발현 프로파일링을 위한 마우스 심장 전구 세포에서 핵 분리
이 논문에서
요약
초록
발달중인 심장은 복잡한 조절 메커니즘에 의해 제어되는 다양한 전구 세포를 포함하는 복잡한 구조입니다. 개별 세포의 유전자 발현 및 염색질 상태를 검사하면 세포 유형 및 상태를 확인할 수 있습니다. 단일 세포 시퀀싱 접근법은 심장 전구 세포 이질성의 여러 가지 중요한 특성을 밝혀냈습니다. 그러나 이러한 방법은 일반적으로 신선한 조직으로 제한되어 기술적 변동성을 줄이기 위해 신선한 조직을 동일한 실행에서 한 번에 처리해야하기 때문에 다양한 실험 조건의 연구를 제한합니다. 따라서 이 분야에서는 단일 핵 RNA 시퀀싱(snRNA-seq) 및 고처리량 시퀀싱(snATAC-seq)을 통한 트랜스포사제 접근 가능한 염색질에 대한 단일 핵 분석과 같은 방법에서 데이터를 생성하는 쉽고 유연한 절차가 필요합니다. 여기에서 우리는 후속 단일 핵 이중 오믹스(결합된 snRNA-seq 및 snATAC-seq)에 대해 핵을 신속하게 분리하는 프로토콜을 제시합니다. 이 방법은 심장 전구 세포의 냉동 샘플에서 핵을 분리 할 수 있으며 미세 유체 챔버를 사용하는 플랫폼과 결합 할 수 있습니다.
서론
선천적 결함 중 선천성 심장 결함 (CHD)이 가장 흔하며 매년 출생의 약 1 %에서 발생합니다 1,2. 유전적 돌연변이는 소수의 경우에만 확인되며, 이는 유전자 조절의 이상과 같은 다른 원인이 CHD 2,3의 병인에 관여함을 의미합니다. 심장 발달은 다양하고 상호 작용하는 세포 유형의 복잡한 과정으로, 인과적 비암호화 돌연변이와 유전자 조절에 미치는 영향을 식별하기가 어렵습니다. 심장의 기관 형성은 심근, 섬유아세포, 심외막 및 심내막 세포를 포함한 심장 세포의 다양한 아형을 생성하는 세포 전구체에서 시작됩니다 4,5. 단세포 유전체학(single-cell genomics)은 심장 발달을 연구하고 세포 이질성이 건강과 질병에 미치는 영향을 평가하는 핵심 방법으로 부상하고 있다6. 다양한 파라미터를 동시에 측정하기 위한 다중 오믹스 분석법의 개발과 전산 파이프라인의 확장은 정상 및 병든 심장에서 세포 유형 및 아형의 발견을 용이하게 했다<....
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
본 연구에서 채택된 동물 시술은 엑스마르세유 대학교(C2EA-14)의 동물 윤리 위원회의 승인을 받았으며, 국가 동물 실험 윤리 위원회(Ministère de l'Education Nationale, de l'Enseignement Supérieur et de la Recherche; 승인 Apafis N°33927-2021111715507212).
1. 해부 전 시간 정합 설정
- 마우스 배아를 생성하려면 심장 영역 분리 9.5일 전에 성인 마우스 사이에 시간 제한 교미를 수행합니다. 이 절차에서는 생후 2-6개월의 야생형 C57BL/6J 마우스를 사용하고 하룻밤 동안 시간 교미를 수행했습니다.
- 다음날 아침, 암컷 쥐에게 질 플러그가 있는지 확인하십시오. 플러그가 배아일(E) 0.5로 식별되는 날을 고려하십시오.
2. 조직 준비 및 세포 분리
- 수태 후 2-6개월된 임산부 C57BL/6J를 CO2를 통해 9.5일째에 안락사시키고 농도가 증가한 후 경추 탈구가 뒤따릅니다. 복부의 아래 부분을 70 % 에탄올로 청소하십시오.
참고: 자궁....
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
단세포 접근법을 위한 단세포 현탁액의 준비와 비교할 때, 단핵 현탁액의 준비는 훨씬 더 까다롭고 더 높은 수준의 분해능과 처리가 필요합니다. snRNA-seq와 snATAC-seq의 성공적인 결합을 위한 핵심 요소는 깨끗하고 손상되지 않은 핵 현탁액입니다. 효율적인 핵 분리를 위한 프로토콜은 각 조직 유형 및 상태(신선 또는 냉동)에 맞게 조정되어야 합니다. 여기서, 냉동 마우스 배아 심장 세포로부터 핵을 분리하기 위해 최적화된 프로토콜이 설명된다. 배아 심장 부위 해부 및 심장 세포 해리에서 핵 분리에 이르는 모든 단계가 그림 1에 요약되어 있습니다. 출발 물질의 경우, 효율적인 핵 분리를 위해 1 x 10⁵-1 x 10⁶ 세포의 세포 수와 세포 생존율 >70%가 권장됩니다. 도 2에 나타낸 바와 같이, 해동 후 죽은 세포를 분류 및 제거하기 위해 이 프로토콜에서 수행된 추가 .......
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
snRNA-seq 및 snATAC-seq 연구를 결합하여 발달 중인 심장의 세포 조성을 분석하면 선천성 심장 질환의 기원에 대한 더 깊은 이해를 얻을 수 있다26. 여러 연구실에서 snRNA-seq27에 대한 심장 조직 동결 보존의 효과를 연구했습니다. 인간 질병의 마우스 모델에서 신선한 미세 해부 조직을 사용하여 snRNA-seq 및 snATAC-seq를 수행하는 것은 서로 다른 실험 조건을 비교할 때 논리적으로 어려울 수 있습니다. 주어진 개발 단계에서 한 가지 어려움은 샘플 처리로 인한 기술적 변동성을 줄이기 위해 대조군과 실험군을 동일한 실행에서 처리해야 한다는 것입니다. 신선한 조직을 처리할 수 없는 경우 결과에 따라 전체 배아 심장 조직을 급속 동결하는 것보다 해리한 다음 냉동 보존하는 것이 좋습니다. 다른 방법보다 한 가지 방법을 선택하는 것은 심장 조직이 전체적으로 동결 된 경우 해동 후 생존 가능한 단일 세포를 분리하는 것이 훨.......
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 공개 할 것이 없습니다.
감사의 글
이 연구는 ERA-CVD-2019 및 ANR-JCJC-2020에서 SS로 지원되었습니다. 귀중한 의견을 제공해 주신 U 1251/Marseille Medical Genetics 연구실의 Genomics and Bioinformatics facility(GBiM)와 익명의 검토자에게 감사드립니다.
....액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 2100 바이오분석기 기기 | 애질런트 | 카탈로그 번호 | |
| 없음 5M 염화나트륨 (NaCl) | 시그마 | 59222C-500ML | |
| BSA 10% | Sigma | A1595-50ML | |
| 크롬 Next GEM Chip J 단일 세포 키트, 16 rxns | 10X 유전체학 | 1000230 | |
| 크롬 Next GEM 단일 세포 멀티옴 ATAC + 유전자 발현 시약 번들, 4 rxns(핵 버퍼 20X 포함) | 10X 유전체학 | 1000285 | |
| Countess 세포 계수 챔버 슬라이드 | Invitrogen | C10283 | |
| Countess III FL | 써모피셔 | 카탈로그 번호 없음 | |
| Digitonin (5%) | Thermofisher | BN2006 | |
| DMSO | Sigma | D2650-5x5ML | |
| DNA LoBind 튜브 | Eppendorf | 22431021 | |
| D-PBS | Thermofisher | 14190094 | 멸균 및 RNase-free |
| 듀얼 인덱스 키트 TT 세트 A 96 rxns | 10X 유전체학 | 1000215 | |
| Falcon 15 mL 원추형 원심분리기 튜브 | 피셔 사이언티픽 | ||
| Falcon 50 mL 원뿔형 원심분리기 튜브 | 피셔 사이언티픽 | ||
| HI-FBS | Thermofisher | A3840001 | 열 비활성화 |
| 고감도 DNA 키트 | Agilent | 5067-4626 | |
| Igepal CA-630 | Sigma | I8896-50ML | |
| Live/Dead Viability/Cytotoxicity Kit | Thermofisher | L3224 | |
| MACS Dead Cell Removal kit: Dead Cell Romoval MicroBeads, Binding Buffer 20X | Miltenyi Biotec | 130-090-101 | |
| MACS 스마트 스트레이너 (30 &마이크로; m) | Miltenyi Biotec | 130-098-458 | |
| 염화 마그네슘 (MgCl2< / sub>) | Sigma | M1028-100ML | |
| Milieu McCoy 5A | Thermofisher | 16600082 | |
| MS 컬럼 | Miltenyi Biotec | 130-042-201 | |
| NovaSeq 6000 S2 | Illumina | 카탈로그 번호 | |
| 없음 페니실린 스트렙토마이신 (Pen/Strep) | Thermofisher | 15070063 | |
| PluriStrainer Mini 40µ m | PluriSelect | V-PM15-2021-12 | |
| 암석 억제제 | Enzo Life Sciences | ALX-270-333-M005 | |
| 단일 인덱스 키트 N 세트 A, 96 rxn | 10X 유전체학 | 1000212 | |
| 표준 90mm 페트리 접시 Sterilin | Thermofisher | 101R20 | |
| 멸균 이중 증류수 | Thermofisher | R0582 | |
| Trizma Hydrochloride 솔루션 (HCl) | Sigma | T2194-100ML | |
| Trypan 블루 염색 (0.4%) | Invitrogen | T10282 | |
| Trypsin 0.05% - EDTA 1X | Thermofisher | 25300054 | |
| Tween20 | Sigma | P9416-50ML | |
| 넓은 오리피스 여과 피펫 팁 200 μ l | Labcon | 1152-965-008-9 | |
| ZEISS SteREO Discovery.V8 | ZEISS | 카탈로그 번호 없음 |
참고문헌
- vander Bom, T., et al. The changing epidemiology of congenital heart disease. Nature Reviews. Cardiology. 8 (1), 50-60 (2011).
- Bouma, B. J., Mulder, B. J. Changing landscape of congenital heart disease. Circulation Research. 120 (6), 908-922 (2017).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가