아데노 관련 바이러스는 현탁 세포 배양에서 생성되며 이중 요오드화놀 밀도 구배 원심분리로 정제됩니다. 총 바이러스 수율을 높이고, 바이러스 침전의 위험을 줄이고, 최종 바이러스 산물을 더욱 농축하기 위한 단계가 포함되어 있습니다. 예상되는 최종 역가는10,12 바이러스 입자/mL에 도달하며 전임상 in vivo 사용에 적합합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
In Vivo 응용 분야를 위한 Iodixanol Density Gradient Centrifugation에 의한 아데노 관련 바이러스의 현탁 배양 생산 및 정제
이 논문에서
요약
초록
이 프로토콜은 1999년에 처음 기술된 AAV를 정제하는 혈청형에 구애받지 않는 방법인 요오드릭사놀 밀도 구배 원심분리에 의한 재조합 아데노 관련 바이러스(rAAV) 생산 및 정제에 대해 설명합니다. rAAV 벡터는 다양한 인간 세포 유형에 전이유전자를 전달하기 위한 유전자 치료 응용 분야에서 널리 사용됩니다. 이 연구에서 재조합 바이러스는 전이유전자, 벡터 캡시드 및 아데노바이러스 도우미 유전자를 암호화하는 플라스미드를 사용하여 현탁 배양에서 Expi293 세포를 transfection하여 생산됩니다. 요오딕사놀 밀도 구배 원심분리는 입자 밀도를 기반으로 전체 AAV 입자를 정제합니다. 또한, 현재 유비쿼터스가 된 이 방법론에는 총 바이러스 수율을 높이고, 단백질 오염으로 인한 침전 위험을 줄이고, 최종 바이러스 생성물을 더욱 농축하기 위한 세 가지 단계가 포함되어 있습니다: 폴리에틸렌 글리콜(PEG) 및 염화나트륨 용액을 사용한 세포 배지에서 바이러스 입자 침전, 요오드릭산올 밀도 구배 원심분리의 두 번째 라운드 도입, 원심 필터를 통한 완충액 교환. 이 방법을 사용하면 in vivo 사용을 위한 탁월한 순도의 1012 바이러스 입자/mL 범위의 역가를 일관되게 달성할 수 있습니다.
서론
재조합 아데노 관련 바이러스(rAAV) 벡터는 척수성 근위축증, 망막 이영양증 및 혈우병 A 1,2,3을 포함한 유전 질환 치료에 널리 사용되는 도구입니다. rAAV 벡터는 선형 단일 가닥 4.7kb DNA 게놈을 가진 작고 외피가 없는 이십면체 바이러스인 야생형 AAV4에 존재하는 바이러스 유전자가 없도록 조작되었습니다. AAV는 1960년대에 아데노바이러스 제제의 오염물질로 처음 발견되었다5. AAV는 ITR을 제외하고 최대 4.9 kb로 패키징할 수 있는 전이유전자의 크기를 제한하는 작은 캡시드 크기에도 불구하고6, 인간에서 비병원성이고, 많은 분열 및 비분열 세포 유형에서 전이유전자 발현을 허용하며, 면역원성 효과가 제한적이기 때문에 전이유전자 전달에 유용하다7.
레의존파보바이러스(dependoparvovirus) 속의 구성원인 rAAV의 생산은 아데노바이러스 또는 단순 헤르페스 바이러스(herpes simplex virus)에 존재하는 도우미 유전자의 발현에 의존한다8. rAAV를 생산하기 위한 몇 가지 전략이 개발되었지만, 아데노바이러스 E1A/E1B 도우미 유전자로 형질전환된 HEK293 세포에서의 생산이 오늘날 가장 확립된 방법이다9. rAAV 생산의 일반적인 접근법은 HEK293 세포를 역말단 반복(ITR) 내에서 전이유전자를 포함하는 3개의 플라스미드, AAV rep 및 cap 유전자, 추가 아데노바이러스 도우미 유전자로 transfection하는 것으로 시작됩니다. 형질주입 후 72시간 후, 세포를 수확하고 처리하여 전이유전자를 포함하는 rAAV를 정제합니다.
치료 목적을 위한 새로운 rAAV 벡터의 개발에서 주요 목표는 형질도입 효율이 향상된 벡터를 생산하는 것입니다. 표적 세포의 형질도입 효율의 증가는 rAAV의 필요한 임상적 투여량의 감소를 의미하며, 따라서 항체 매개 중화에서 급성 독성에 이르는 면역원성 부작용의 가능성을 감소시킨다10,11. rAAV 벡터의 형질도입 효능을 개선하기 위해, 패키징된 게놈 또는 캡시드를 변경할 수 있습니다. 패키징된 게놈 디자인을 통해 형질도입 효능을 조정하는 실행 가능한 방법에는 강력한 조직 특이적 promoter의 통합, mRNA 처리 요소의 신중한 선택, 번역 효율 향상을 위한 코딩 서열 최적화가 포함됩니다12. 캡시드에 대한 변경은 표적 인간 세포 유형에 대한 영양성을 증가시키는 것을 목표로 이루어집니다. 새로운 rAAV 전이유전자 전달 벡터 캡시드를 개발하기 위한 노력은 일반적으로 특정 세포 수용체를 표적으로 하는 특정 돌연변이를 가진 AAV 캡시드의 합리적인 설계에 초점을 맞추거나, 하나의 특정 수용체를 표적으로 하지 않고 고복잡성 조합 캡시드 라이브러리에서 특정 세포 유형에 대한 영양성을 가진 캡시드를 식별하기 위한 유도 진화에 초점을 맞추는 것이 특징입니다(일부 그룹은 이러한 접근 방식을 결합하지만)13, 14,15. 유도 진화 접근법에서, 조합 캡시드 라이브러리는 캡시드 외장(16) 상에 돌연변이된 가변 영역들을 갖는 특정 혈청형 골격을 사용하여 구성된다. 조합 캡시드 라이브러리는 종종 인간에서 유래하지 않은 AAV 혈청형으로 구성되며, 임상 사용 중 기존 면역의 위험을 감소시킨다10. 따라서 모든 혈청형에 적용할 수 있는 정제 방법은 이러한 라이브러리의 중추 역할을 하는 덜 일반적으로 사용되는 혈청형에 대한 혈청형 특이적 최적화의 필요성을 제거하는 데 이상적입니다.
요오딕사놀 밀도 구배 원심분리는 높은 감염성을 가진 rAAV의 높은 역가를 정제하는 데 이용된다17. 이 프로토콜에서 rAAV는 AAV의 큰 역가를 생산하는 데 필요한 노동력을 줄이기 위해 부유 세포 배양에서 생산됩니다. 오염 단백질의 존재를 줄이고 바이러스 침전의 위험을 줄이기 위해 세포 용해물을 청소하기 위한 원심분리 단계도 포함됩니다. 이 프로토콜은 전임상 사용에 적합한 고순도 rAAV 제제를 생산하는 비용 효율적인 방법입니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
이 프로토콜에 사용된 용액 및 버퍼의 구성은 표 1에 나와 있습니다.
| 용액 | 구성 | |
| AAV 용해 완충액 | 5M NaCl 용액 1.2mL | |
| 2M Tris-HCl pH 1 용액 8.5mL | ||
| 80 uL의 1 M MgCl2 용액 | ||
| mQ 물을 40mL까지 | ||
| AAV 침전 용액 | 40 g 나무 못 8000 | |
| 5M NaCl 용액 50mL | ||
| mQ 물에서 100mL까지 | ||
| 15% 요오드산올 분획 | 7.5 mL 옵티프렙 | |
| 10X DPBS 3mL | ||
| 5M NaCl 용액 6mL | ||
| 30 uL의 1 M MgCl2 용액 | ||
| mQ - 30 mL | ||
| 25% 요오드산올 분획 | 12. 5mL 옵티프렙 | |
| 10X DPBS 3mL | ||
| 30 uL의 1 M MgCl2 용액 | ||
| 60 uL 페놀 레드 용액 | ||
| mQ - 30 mL | ||
| 40% 요오드산올 분획 | 33.3 mL 옵티프렙 | |
| 10X DPBS 5mL | ||
| 50 uL의 1 M MgCl2 용액 | ||
| mQ - 50 mL | ||
| 60% 요오드산올 분획 | 50mL 옵티프렙 | |
| 100 uL 페놀 레드 용액 | ||
| AAV 완충 용액 | 5m NaCl 8mL | |
| 20 uL 10% Pluronic F-68 | ||
| PBS - 200 mL | ||
표 1: 이 프로토콜에 사용되는 솔루션에 대한 솔루션 구성.
1. Expi293 세포의 삼중 형질주입
- 5 x 10⁵ 생존 가능한 세포(vc)/mL의 초기 밀도에서 Expi293 세포(재료 표 참조)를 시드합니다.
- 세포가 3-5 x 10⁶ vc/mL의 밀도에 도달할 때까지 37% CO2 및 125rpm의 쉐이커 속도로 8°C에서 배양합니다. 자동화된 세포 계수기와 함께 trypan blue exclusion을 사용하여 세포 밀도 및 생존율을 모니터링합니다(재료 표 참조).
- 세포가 원하는 세포 밀도에 도달하면 새 배지를 추가하여 세포를 1에서 10까지 분할하여 총 부피가 원래 부피의 10배가 되도록 합니다. 필요한 경우 세포를 더 큰 플라스크로 옮깁니다. 인큐베이션으로 돌아갑니다.
- 1L 플라스크의 250mL 배지에서 최소 2 x 10⁶vc /mL의 밀도에 도달할 때까지 1.2-1.3단계에 설명된 대로 세포를 계속 확장합니다.
- transfection 전날, 세포를 250mL 배지에 2 x 10⁶vc /mL로 희석하고 필요에 따라 여분의 세포를 폐기합니다. 밤새 세포를 배양합니다.
- 형질주입 당일, 세포의 절반을 58 x g 에서 18°C에서 5분 동안 원심분리합니다. 세포 펠릿을 동일한 부피(125mL)의 신선한 배지에 재현탁시킵니다. 세포 생존율은 98%에 가까워야 합니다.
- 50mL 코니컬 튜브 2개를 준비합니다. 하나는 "PEI"이고 다른 하나는 "DNA"입니다.
- PEI라고 표시된 원추형 튜브에서 1.2mL의 PEI(폴리에틸렌이민, 재료 표 참조)를 OptiMEM 배지에서 총 부피 12.5mL로 희석합니다.
- DNA로 표지된 원뿔형 튜브에서 OptiMEM 배지의 총 부피 12.5mL에서 총 500μg의 DNA에 플라스미드 DNA의 등몰 용액을 준비합니다.
- DNA 용액을 PEI 용액에 넣고 여러 번 뒤집어 완전히 결합시킨 다음 실온에서 10분 동안 배양합니다.
참고: PEI가 DNA와 하전 복합체를 형성하기 위해 DNA-PEI 용액을 10분 동안 배양하는 것이 중요합니다. - DNA-PEI 용액을 10분 동안 배양한 후 혈청학적 피펫을 사용하여 DNA-PEImax 용액을 Expi293 세포에 천천히 적용합니다. transfection된 세포를 인큐베이터로 되돌리고 72시간 동안 배양합니다(그림 1).
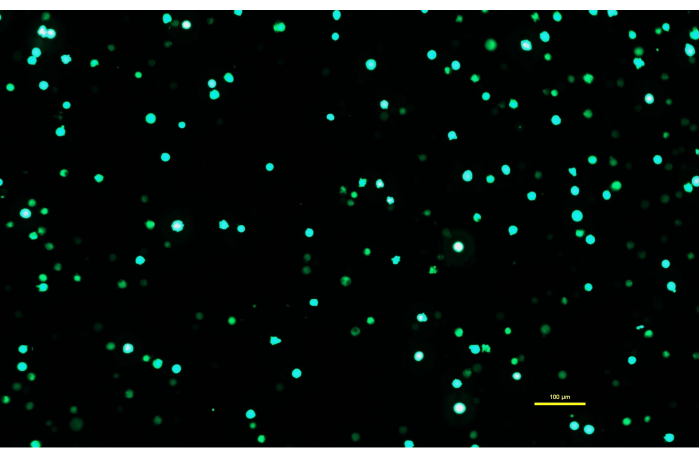
그림 1: transfection 2일 후 GFP를 발현하는 Expi293 세포. GFP 유전자를 포함하는 플라스미드로 transfection한 후, Expi293 세포는 eGFP를 일시적으로 발현합니다. 세포 형태는 둥글다. 이미지는 15ms의 노출 시간으로 캡처되었습니다. 현미경 이미지는 epi-fluorescence illumination과 10x/0.30 대물렌즈가 장착된 도립 현미경을 사용하여 획득됩니다. 스케일 바 = 100 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
2. rAAV 벡터 정제
- 72시간 후 현탁액의 세포를 2개의 250mL 코니컬 튜브로 옮기고 4°C에서 10분 동안 415 x g 으로 스핀 다운합니다.
- 상층액 배지를 새 500mL 코니컬 튜브에 붓고 나중에 처리할 수 있도록 0°C의 얼음 위에 보관합니다.
- 각 세포 펠릿을 10mL의 AAV 용해 완충액에 재현탁시킵니다(표 1). 두 개의 용해물을 튜브 중 하나에 함께 모으십시오. 다른 튜브를 AAV 용해 완충액 5mL를 추가로 헹군 다음 고인 용해물에 추가합니다. -70 °C에서 얼립니다.
참고: 이 시점에서 실험을 일시 중지할 수 있습니다. 상층액 매체를 얼음이 아닌 -70°C에서 보관하십시오. - 2.2단계에서 1:4 부피의 AAV 침전 용액을 상층액 매체에 추가합니다. 여러 번 뒤집어 완전히 혼합하고 0°C에서 얼음 위에서 최소 2시간 또는 밤새 배양합니다.
- 배양된 용액을 3000 x g 에서 4°C에서 1시간 동안 원심분리합니다.
- 상층액을 버리고 바이러스 침전물이 포함된 펠릿을 5mL의 AAV 용해 완충액에 재현탁시킵니다.
- 세포 용해물을 수조에서 37°C에서 해동합니다.
- 바이러스 침전물을 세포 용해물과 함께 모읍니다. 이것이 미처리 용해물입니다. 바이러스 침전물이 들어 있는 원심분리 튜브를 AAV 용해 완충액 5mL를 추가로 헹구고 미처리 용해물과 함께 고입니다.
- 원유 용해물을 -70°C로 얼린 다음 37°C에서 해동합니다. 이 주기를 한 번 더 반복합니다.
알림: 조용해물을 해동하는 데 필요한 시간보다 더 오래 37°C에 두어서는 안 됩니다. - 세 번째로 해동되면 즉시 4μL의 벤조나아제를 원유 용해물에 첨가하고 뒤집어 혼합하고 37°C에서 30분 동안 배양합니다.
- 18°C에서 650 x g 에서 10분 동안 원심분리합니다.
- 상층액을 깨끗한 50mL 코니컬 튜브에 옮깁니다. 이것은 조잡한 바이러스입니다. 펠릿을 버리십시오.
- 미처리 바이러스를 18°C에서 3000 x g 에서 추가로 30분 동안 원심분리하여 오염 단백질을 제거합니다.
- 상층액을 깨끗한 50mL 코니컬 튜브에 옮깁니다. 이것은 명확한 바이러스입니다.
참고: 이 시점에서 실험을 일시 중지할 수 있습니다. 정제된 바이러스를 -70°C까지 얼립니다. - 4개의 연동 튜브가 있는 다중 채널 연동 펌프를 설정합니다( 재료 표 참조). 각 튜브의 양쪽 끝에 모세관을 부착합니다.
- 펌프의 입력 쪽에 있는 모세관을 탈이온수로 채워진 비커에 넣습니다. 펌프의 출력 쪽에 있는 모세관을 빈 비커에 놓습니다. 25.0rpm에서 연동 펌프를 작동하여 튜브를 탈이온수(DI)로 세척합니다.
- 완전히 세척되면 튜브에 공기만 채워질 때까지 펌프를 작동하여 연동 튜브를 비우십시오. 보푸라기가 없는 깨끗한 물티슈에 모든 모세관을 놓습니다.
- 4개의 초원심분리기 튜브를 펌프의 출력 쪽에 있는 랙에 배치합니다.
- 10mL 혈청학적 피펫을 사용하여 10mL의 정제된 바이러스를 각 초원심분리기 튜브에 조심스럽게 분주합니다. 기포가 들어오지 않도록 주의하십시오.
참고: 필요한 경우 각 튜브의 정제된 바이러스 부피를 튜브당 최대 12mL까지 늘릴 수 있습니다. 아래 2.25 단계에서 60 % 요오드산올의 양을 적절하게 줄이십시오. - 정제된 바이러스는 연동 펌프를 사용하여 가장 낮은 밀도에서 가장 높은 밀도까지 요오딕산올 분획(표 1)으로 기초가 됩니다. 15% 분수가 먼저 추가되고 25% 분수, 40% 분수, 마지막으로 60% 분수가 추가됩니다. 15% 요오드릭산올 분획 22mL(초원심분리 튜브당 5.5mL)를 깨끗한 50mL 원뿔형 튜브에 옮깁니다. 펌프의 입력 쪽에 있는 모세관을 튜브에 놓고 모든 모세관이 튜브 바닥에 닿도록 주의합니다.
- 펌프를 시작하고 튜브가 요오드화 산올 분획으로 채워지도록 합니다. 요오딕산올 분획이 펌프의 출력 측에 있는 모세관 끝에 도달하면 펌프를 멈춥니다.
- 정제된 바이러스가 있는 각 초원심분리기 튜브에 하나의 출력 모세관을 삽입하고 모세관이 각 초원심분리기 튜브의 바닥에 닿도록 주의합니다.
알림: 모세혈관에 공기가 남아 있지 않은 것이 매우 중요합니다. 요오딕산올은 약간 다른 속도로 연동 튜브를 통해 흐를 수 있으므로 각 개별 출력 모세관이 정제된 바이러스에 삽입하기 전에 요오딕산올로 완전히 채워져 있는지 확인하십시오. 펌프를 여러 번 중지하고 시작해야 할 수도 있습니다. - 펌프를 시작하고 초원심분리기 튜브가 채워지도록 합니다. 15% 분획 중 마지막 부분이 입력 모세관으로 들어가려고 할 때 펌프를 중지하십시오. 연동 튜브에 기포가 들어가지 않는 것이 중요합니다.
알림: 기포가 입력 모세관에 들어가면 펌프를 반대 방향으로 잠시 작동시켜 다시 밀어낼 수 있습니다. - 25% 요오딕산올 분획물 22mL(초원심분리 튜브당 5.5mL)를 50mL 코니컬 튜브에 옮깁니다. 모든 모세관이 튜브 바닥에 닿도록 주의하고 펌프를 시작합니다. 25% 분획 중 마지막 분획이 입력 모세관으로 들어가려고 할 때 펌프를 중지합니다.
- 40% 요오드릭산올 분획 20mL(초원심분리 튜브당 5mL)로 2.24단계를 반복한 다음 60% 분획 24mL(초원심분리기 튜브당 6mL)로 반복합니다.
- 초원심분리기 튜브에 아직 채워지지 않은 부피가 남아 있으면 초원심분리기 튜브가 액체로 완전히 채워질 때까지 60% 분획을 계속 추가합니다.
- 용해물이 상단에 돔을 만들지만 튜브에서 넘치지 않을 때까지 각 튜브를 채웁니다. 펌프를 멈추고 요오드릭산올 구배를 방해하지 않도록 주의하면서 각 출력 모세관을 조심스럽게 제거합니다.
- 각 초원심분리기 튜브에 스페이서를 씌우고 Type 70 Ti 로터에 장착합니다( 재료 표 참조).
알림: 로터가 적절하게 균형을 이루고 있는지 확인하십시오. 적절한 교육 없이 초원심분리기를 작동하지 마십시오. - Type 70 Ti 로터를 초원심분리기에 넣고 18°C에서 1시간 동안 489,000 x g 의 속도로 원심분리합니다.
- 원심분리 후 초원심분리기에서 로터를 언로드합니다. 니들 노즈 플라이어를 사용하여 로터에서 각 초원심분리기 튜브를 조심스럽게 제거하고 요오드화 구배를 방해하지 않도록 주의합니다.
- 클램프가 있는 지지 링 스탠드를 사용하여 하나의 초원심분리기 튜브를 고정합니다.
- 20GA 바늘을 5mL 주사기에 부착하고 따로 보관합니다. 보푸라기가 없는 물티슈를 사용하여 초원심분리기 튜브에서 캡을 제거합니다.
- 바늘로 초원심분리기 튜브의 벽을 3%-40% 요오드산올 계면 아래 약 60mm에 통과시킵니다(그림 2).
- 계면과 40% 부분의 일부를 천천히 흡입합니다. 총 약 4mL를 추출하기 위해 40% 분획의 상단을 흡입하지 마십시오.
- 초원심분리 튜브의 열린 상단 위에 한 손가락을 대고 주사기를 당겨 흡입된 AAV 분획을 50mL 코니컬 튜브로 옮깁니다. 날카로운 물건 용기에 담긴 주사기를 버리십시오. 초원심분리기 튜브를 폐기하십시오.
- 각 초원심분리기 튜브에 대해 2.31-2.35단계를 반복합니다.
- 흡인된 AAV 분획을 AAV 용해 완충액에서 약 2배 희석하여 40mL 부피로 희석합니다.
- 2.16-2.17단계에 설명된 대로 연동 튜브를 세척합니다.
참고: 이 시점에서 실험을 일시 중지할 수 있습니다. 희석된 AAV 분획을 0°C에서 밤새 보관합니다. - 희석된 AAV 분획 각각 20mL를 두 개의 새로운 초원심분리기 튜브에 로드합니다.
- 요오드딕사놀 밀도 구배 원심분리의 두 번째 라운드의 경우, 희석된 AAV 분획은 40% 분획의 10mL(초원심분리 튜브당 5mL)와 60% 분획의 14mL(초원심분리 튜브당 7mL)만을 사용하여 위에서 설명한 대로 언더레이됩니다. 초원심분리 및 흡인을 위해 2.29-2.36단계를 반복합니다.
알림: 연동 펌프와 튜빙을 보관하기 전에 2.16-2.17단계에 설명된 대로 튜빙을 DI 물로 씻어내십시오.
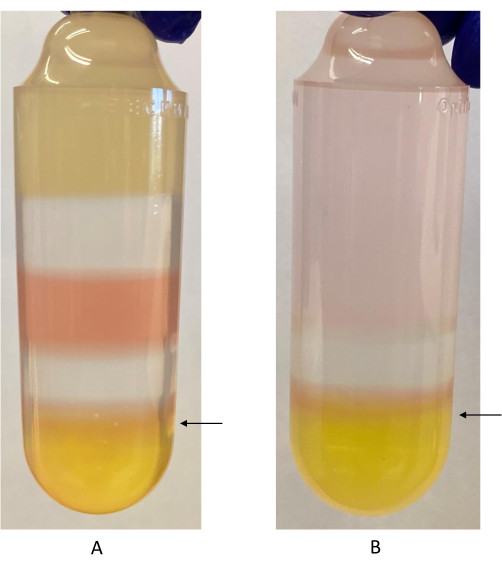
그림 2: 라벨링된 40%-60% 요오드릭사놀 계면이 있는 요오딕사놀 구배. (A) 첫 번째 요오드산올 구배. 페놀 레드는 40% 요오드산올 및 60% 요오드옥산올 분획에 사용됩니다. 두 분획 사이의 pH 차이 때문에 다른 색으로 나타납니다. 화살표는 rAAV 분획을 수확하기 위해 주사기를 삽입해야 하는 위치, 40%-60% 요오드옥산올 계면 바로 아래를 나타냅니다. (B) 두 번째 요오드화 구배. 이 단계에서는 40% 및 60% 요오드산올 분획만 사용됩니다. 화살표는 rAAV 분획을 채취하기 위해 주사기를 삽입해야 하는 위치를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
3. 완충액 교환 및 바이러스 농도
- 요오드릭사놀 밀도 구배 원심분리의 두 번째 라운드에서 AAV 분획을 얻은 후 AAV 완충 용액으로 2배 희석합니다.
- 필터 상단에 AAV 완충 용액 20mL를 추가하여 원심 필터의 평형을 맞춥니다. 18°C에서 3000 x g 에서 5분 동안 장치를 원심분리하고 흐름을 버립니다.
- 희석된 AAV 분획을 원심 필터에 추가합니다. 18°C에서 3000 x g 에서 5분 동안 장치를 원심분리하고 흐름을 버립니다.
- 필터 상단에 AAV 완충 용액 20mL를 추가합니다. 18°C에서 3000 x g 에서 5분 동안 장치를 원심분리하고 흐름을 버립니다.
알림: 원심 필터 멤브레인이 막혀 용액이 비효율적으로 흐르는 경우 P200 마이크로피펫을 조심스럽게 사용하여 필터 상단의 용액을 위아래로 끌어냅니다. 마이크로피펫 팁으로 필터를 만지지 않도록 각별히 주의하십시오. - 3.4단계를 두 번 더 반복합니다.
알림: 필터 상단에 최소 1mL의 부피를 유지하여 AAV가 과도하게 농축되지 않았는지 확인합니다. 과집중을 방지하기 위해 원심분리 시간을 조정해야 할 수도 있습니다. AAV가 과도하게 농축되면 강수가 발생할 수 있습니다. - 1012 vg/mL 범위의 최종 역가를 얻으려면 바이러스를 약 1 mL의 최종 부피로 스핀 다운합니다.
참고: 사용된 혈청형 백본과 바이러스의 패키징 효율에 따라 바이러스를 더 작은 부피로 농축해야 할 수도 있습니다. - p1000 마이크로피펫을 사용하여 농축된 AAV를 원심 필터 상단에서 마이크로 원심분리 튜브로 옮깁니다. p200 마이크로피펫을 사용하여 50μL의 AAV 완충액으로 원심 필터를 세척하여 남아 있는 바이러스를 수집하고 농축된 나머지 AAV와 함께 고입니다.
- 적정을 위해 농축된 AAV의 2μL 부분 표본을 따로 보관합니다. qPCR에 사용할 수 있는 ITR 입문서를 보려면 보충 표 1 을 참조하십시오.
- 농축된 AAV를 0.2μm 주사기 필터에 통과시켜 멸균합니다.
알림: 소량을 멸균할 때는 바이러스 손실을 최소화하기 위해 직경이 작은 주사기 필터를 선택하십시오. 작은 직경의 저단백질 결합 필터를 사용하면 바이러스 손실이 최소화됩니다(데이터는 표시되지 않음). - 멸균된 AAV는 즉시 세포를 transduction하는 데 사용하거나 4°C에서 보관하여 4주 이내에 사용할 수 있습니다. 장기간 보관을 위해 -70 °C에서 보관해야 합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
이 방법은 mL당 최소10,12개의 바이러스 입자의 역가를 얻는 데 사용할 수 있습니다. 역가는 보충 표 1에 제공된 ITR 프라이머를 사용하는 qPCR, ddPCR 또는 기타 적정 방법으로 얻을 수 있습니다(그림 3). 최적이 아닌 역가는 패키징 효율이 좋지 않은 캡시드를 암호화하는 캡 유전자를 사용하여 발생할 수 있습니다.
차선의 결과를 얻을 수 있는 또 다른 원인은 Expi293 세포의 형질도입 효율이 낮다는 것입니다. transfection 당일에 세포 밀도가 3-4 x 10⁶ vc/mL이고 세포 생존율이 98%에 가까운 것이 좋습니다. 본 연구에서 저자는 이 프로토콜에 따라 1.07 x 10¹² vg의 역가를 얻었습니다. 이 출력량은 AAVrh7418 포장에서 얻은 이전 ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
이중 요오드산올 밀도 구배 정제 프로토콜은 수용체 특이성에 관계없이 모든 AAV 돌연변이 변이체에 적용할 수 있기 때문에 보편적인 방법입니다. AAV 정제의 초기 방법은 입자 밀도에 의존하고 CsCl에서의 isopycnic 원심분리 및 연속 자당 밀도 구배 원심분리를 포함하였다19. 나중에, 혈청형 특이적 접근법이 개발되었는데, 이는 세파로스 컬럼20에 결합된 단클론 항체를 사용하였다. 불연속 요오딕산올 구배를 사용하는 새로운 밀도 기반 정제 방법이 1999년에 개발되었으며 CsCl 구배에서 분리한 것보다 더 높은 감염성을 가진 AAV 분리물을 수득했습니다21. AAV를 정제하는 방법은 2000년대 초반까지 계속 개발되었으며, 일부 그룹은 고성능 액체 크로마토그래피를 사용하여 70%를 초과하는 미처리 용해물에서 회수되는 rAAV를 정제했습니다22,23,24.<...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 보고할 공개가 없습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 5810 R 벤치탑 원심분리기 | Eppendorf | 22625501 | |
| 8채널 연동 펌프 | 왓슨말로우 | 020.3708.00A | |
| 자동 세포 계수기 | NanoEntek | EVE-MC | |
| Avanti J-E 고속 원심분리기 | Beckman Coulter | 369001 | |
| Benzonase | Thermo Scientific | 88701 | |
| 생물 안전 캐비닛 | Labconco | 322491101 | |
| CO2 incubator with shaker | 8% CO2 및 37°C로 설정; C | ||
| 원뿔형 원심분리기 튜브 | Thermo Scientific | 339652 | 50 mL |
| 원뿔형 원심분리기 튜브 | Thermo Scientific | 339650 | 15 mL |
| 일회용 마이크로 피펫 | Fisherbrand | 21-164-2G | Capillaries |
| Dulbecco의 인산염 완충 식염수(CaCl2 및 MgCl2 (디펜스) (10배) | Sigma-Aldrich | D1408 | |
| ECLIPSE Ts2R-FL 도립 현미경 | Nikon | ||
| Expi293 표현 매체 | Gibco | A1435101 | |
| Expi293F 세포 | Gibco | A14527 | |
| 필터 팁 | USA Scientific | 1126-7810 | 1000 µ L |
| 필터 팁 | USA Scientific | 1120-8810 | 200 µ L |
| 필터 팁 | USA Scientific | 1120-1810 | 20 µ L |
| 필터 팁 | USA Scientific | 1121-3810 | 10 µ L |
| 하이포더믹 니들 | Tyco Healthcare | 820112 | 20 GA x 1-1/2 A |
| 얼음 양동이 뚜껑 | VWR | 10146-184 | |
| JS-5.3 로터 | Beckman Coulter | 368690 | |
| 마그네슘 클로라이드 용액 (1 M) | Millipore Sigma | M1028-100ML | |
| 메탈 스탠드 및 클램프 | Fisherbrand | 05-769-6Q | |
| 마이크로 원심분리기 튜브 | Eppendorf | 22600028 | 1.5 mL |
| 니들 노즈 플라이어 | |||
| Optima XE-90 초원심분리기 | Beckman Coulter | A94471 | |
| Opti-MEM I Reduced-Serum Medium | Gibco | 31985062 | |
| OptiPrep 밀도 구배 배지(요오딕산올) | Serumwerk | AXS-1114542 | 60% 요오딕산올 용액 |
| P1000 Pipet | Gilson | F144059M | |
| P2 Pipet | Gilson | F144054M | |
| P20 Pipet | Gilson | F144056M | |
| P200 Pipet | Gilson | F144058M | |
| 페놀 레드 용액 | Sigma-Aldrich | P0290 | |
| 인산염 완충 식염수(PBS) | Sigma-Aldrich | P4474 | |
| Pipet-Aid XP 피펫 컨트롤러 | Drummond Scientific | 4-000-101 | |
| Plasmid pCapsid | De novo 또는 Addgene 등 | N/A | 우리는 pACGrh74를 사용했습니다. |
| Plasmid pHelper | Addgene | 112867 | |
| Plasmid pTransgene | De novo 또는 Addgene 등 | N/A | 우리는 pdsAAV-GFP를 사용했습니다. |
| Pluronic F-68 폴리올 용액 (10 %) | MP Biomedicals | 92750049 | |
| 폴리에틸렌 글리콜 8000 | Research Products International | P48080-500.0 | |
| 폴리 에틸 렌 이민 HCl 최대 (PEI-Max) | Polysciences | NC1038561 | 물에 희석 40 μ M |
| 폴리프로필렌 원심분리기 튜브, 멸균 | Corning | 431123 | 500 mL |
| 폴리프로필렌 원심분리 튜브, 멸균 | Corning | 430776 | 250 mL |
| 폴리프로필렌 Optiseal 튜브 | Beckman Coulter | 361625 | |
| 혈청학 피펫 | Alkali Scientific | SP250-B | 50 mL |
| 혈청학 피펫 | Alkali Scientific | SP225-B | 25 mL |
| 혈청학 피펫 | 알칼리 Scientific | SP210-B | 10 mL |
| 혈청학 피펫 | 알칼리 Scientific | SP205-B | 5 mL |
| 셰이커 플라스크 | Fisherbrand | PBV1000 | 1 L |
| 셰이커 플라스크 | Fisherbrand | PBV50-0 | 500 mL |
| 셰이커 플라스크 | Fisherbrand | PBV250 | 250 mL |
| 셰이커 플라스크 | Fisherbrand | PBV12-5 | 125 mL |
| 염화나트륨 용액 (5 M) | Fisher Scientific | NC1752640 | |
| 멸균 주사기 | Fisherbrand | 14-955-458 | 5 mL |
| 주사기 필터 | Millipore | SLGV013SL | 0.22 미크론 |
| Tris-HCl pH 8.5 (1 M) | Kd Medical | RGE3363 | |
| Trypan blue 해결책 | Gibco | 15250061 | |
| 튜브 랙 어셈블리 | Beckman Coulter | 361646 | |
| 튜브 스페이서(x4) | Beckman Coulter | 361669 | |
| 연동 펌프용 튜빙 | Fisher Scientific | 14190516 | |
| Type 70 Ti 고정각 티타늄 로터 | Beckman Coulter | 337922 | |
| 초저온 냉동고 | -70으로 설정 ° C | ||
| Vivaspin 20 원심 집중 | Sartorius | VS2041 | |
| 수조 | 37 °로 설정; 씨 |
참고문헌
- Strauss, K. A., et al. Onasemnogene abeparvovec for presymptomatic infants with three copies of SMN2 at risk for spinal muscular atrophy: the Phase III SPR1NT trial. Nat Med. 28 (7), 1390-1397 (2022).
- Fuller-Carter, P. I., Basiri, H., Harvey, A. R., Carvalho, L. S. Focused update on AAV-based gene therapy clinical trials for inherited retinal degeneration. BioDrugs. 34 (6), 763-781 (2020).
- George, L. A., et al. Multiyear factor VIII expression after AAV gene transfer for hemophilia A. N Engl J Med. 385 (21), 1961-1973 (2021).
- Naso, M. F., Tomkowicz, B., Perry, W. L., Strohl, W. R. Adeno-Associated Virus (AAV) as a vector for gene therapy. Biodrugs. 31 (4), 317-334 (2017).
- Atchison, R. W., Casto, B. C., Hammon, W. M. cD. Adenovirus-associated defective virus particles. Science. 149 (3685), 754-756 (1965).
- Wu, Z., Yang, H., Colosi, P. Effect of genome size on AAV vector packaging. Mol Ther. 18 (1), 80-86 (2010).
- Samulski, R. J., Muzyczka, N. AAV-mediated gene therapy for research and therapeutic purposes. Annu Rev Virol. 1 (1), 427-451 (2014).
- Zolotukhin, S. Production of recombinant adeno-associated virus vectors. Hum Gene Ther. 16 (5), 551-557 (2005).
- Penaud-Budloo, M., François, A., Clément, N., Ayuso, E. Pharmacology of recombinant adeno-associated virus production. Mol Ther - Methods Clin Dev. 8, 166-180 (2018).
- Costa-Verdera, H., et al. Understanding and Tackling immune responses to adeno-associated viral vectors. Hum Gene Ther. 34 (17-18), 836-852 (2023).
- Ertl, H. C. J. Mitigating serious adverse events in gene therapy with AAV Vectors: Vector dose and immunosuppression. Drugs. 83 (4), 287-298 (2023).
- Pupo, A., et al. AAV vectors: The Rubik's cube of human gene therapy. Mol Ther. 30 (12), 3515-3541 (2022).
- Marsic, D., et al. Vector design tour de force: Integrating combinatorial and rational approaches to derive novel adeno-associated virus variants. Mol Ther. 22 (11), 1900-1909 (2014).
- Grimm, D., Zolotukhin, S. E Pluribus Unum: 50 Years of research, millions of viruses, and one goal-tailored acceleration of AAV evolution. Mol Ther. 23 (12), 1819-1831 (2015).
- Biswas, M., et al. Engineering and in vitro selection of a novel AAV3B variant with high hepatocyte tropism and reduced seroreactivity. Mol Ther - Methods Clin Dev. 19, 347-361 (2020).
- Perabo, L., et al. In vitro selection of viral vectors with modified tropism: the adeno-associated virus display. Mol Ther. 8 (1), 151-157 (2003).
- Crosson, S. M., Dib, P., Smith, J. K., Zolotukhin, S. Helper-free production of laboratory grade AAV and purification by iodixanol density gradient centrifugation. Mol Ther - Methods Clin Dev. 10, 1-7 (2018).
- Chan, C., Harris, K. K., Zolotukhin, S., Keeler, G. D. Rational design of AAV-rh74, AAV3B, and AAV8 with limited liver targeting. Viruses. 15 (11), 2168(2023).
- Schmidt, O. W., Cooney, M. K., Foy, H. M. Adeno-associated virus in adenovirus type 3 conjunctivitis. Infect Immun. 11 (6), 1362-1370 (1975).
- Grimm, D., Kern, A., Rittner, K., Kleinschmidt, J. A. Novel tools for production and purification of recombinant adenoassociated virus vectors. Hum Gene Ther. 9 (18), 2745-2760 (1998).
- Zolotukhin, S., et al. Recombinant adeno-associated virus purification using novel methods improves infectious titer and yield. Gene Ther. 6 (6), 973-985 (1999).
- Clark, K. R., Liu, X., Mcgrath, J. P., Johnson, P. R. Highly purified recombinant adeno-associated virus vectors are biologically active and free of detectable helper and wild-type viruses. Hum Gene Ther. 10 (6), 1031-1039 (1999).
- Debelak, D., et al. Cation-exchange high-performance liquid chromatography of recombinant adeno-associated virus type 2. J Chromatogr B Biomed Sci App. 740 (2), 195-202 (2000).
- Burova, E., Ioffe, E. Chromatographic purification of recombinant adenoviral and adeno-associated viral vectors: methods and implications. Gene Ther. 12 (1), S5-S17 (2005).
- Adams, B., Bak, H., Tustian, A. D. Moving from the bench towards a large scale, industrial platform process for adeno-associated viral vector purification. Biotechnol Bioeng. 117 (10), 3199-3211 (2020).
- Grieger, J. C., Choi, V. W., Samulski, R. J. Production and characterization of adeno-associated viral vectors. Nat Protoc. 1 (3), 1412-1428 (2006).
- Florea, M., et al. High-efficiency purification of divergent AAV serotypes using AAVX affinity chromatography. Mol Ther Methods Clin Dev. 28, 146-159 (2022).
- Chamberlain, K., Riyad, J. M., Weber, T. Expressing transgenes that exceed the packaging capacity of adeno-associated virus capsids. Hum Gene Ther Methods. 27 (1), 1-12 (2016).
- Green, E. A., Hamaker, N. K., Lee, K. H. Comparison of vector elements and process conditions in transient and stable suspension HEK293 platforms using SARS-CoV-2 receptor binding domain as a model protein. BMC Biotechnol. 23 (1), 7(2023).
- Erbacher, P., Zou, S., Bettinger, T., Steffan, A. M., Remy, J. S. Chitosan-based vector/DNA complexes for gene delivery: Biophysical characteristics and transfection ability. Pharm Res. 15 (9), 1332-1339 (1998).
- Vandenberghe, L. H., et al. Efficient serotype-dependent release of functional vector into the culture medium during adeno-associated virus manufacturing. Hum Gene Ther. 21 (10), 1251-1257 (2010).
- Summerford, C., Samulski, R. J. Membrane-associated heparan sulfate proteoglycan is a receptor for adeno-associated virus type 2 virions. J Virol. 72 (2), 1438-1445 (1998).
- Wright, J. F., et al. Identification of factors that contribute to recombinant AAV2 particle aggregation and methods to prevent its occurrence during vector purification and formulation. Mol Ther. 12 (1), 171-178 (2005).
- Gruntman, A. M., et al. Stability and compatibility of recombinant adeno-associated virus under conditions commonly encountered in human gene therapy trials. Hum Gene Ther Methods. 26 (2), 71-76 (2015).
- Srivastava, A. Rationale and strategies for the development of safe and effective optimized AAV vectors for human gene therapy. Mol Ther Nucleic Acids. 32, 949-959 (2023).
- Mullard, A. FDA approves first gene therapy for Duchenne muscular dystrophy, despite internal objections. Nat Rev Drug Discov. 22 (8), 610-610 (2023).
- Center for Biologics Evaluation and Research. Approved Cellular and Gene Therapy Products. US Food Drug Adm. , (2023).
- Kang, L., et al. AAV vectors applied to the treatment of CNS disorders: Clinical status and challenges. J Control Release Off J Control Release Soc. 355, 458-473 (2023).
- De Wolf, D., Singh, K., Chuah, M. K., VandenDriessche, T. Hemophilia gene therapy: The end of the beginning. Hum Gene Ther. 34 (17-18), 782-792 (2023).
- Simons, E. J., Trapani, I. The opportunities and challenges of gene therapy for treatment of inherited forms of vision and hearing loss. Hum Gene Ther. 34 (17-18), 808-820 (2023).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
