우리는 막 단백질을 재구성하고 효소 및 기타 수용성 구성 요소를 마이크로미터 미만 및 마이크로미터 크기의 지질 소포에 캡슐화하기 위한 프로토콜을 제시합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
정제된 구성 요소를 사용하여 통합 막 단백질, 효소 및 형광 기반 센서를 포함하는 복잡한 단백질 네트워크를 소포에 통합하는 방법을 제시합니다. 이 방법은 생물 반응기의 설계 및 건설과 복잡한 평형 외 대사 반응 네트워크 연구와 관련이 있습니다. 우리는 이전에 개발된 프로토콜에 따라 (다중) 막 단백질을 큰 단층 소포(LUV)로 재구성하는 것으로 시작합니다. 그런 다음 동결-해동-압출을 통해 정제된 효소, 대사 산물 및 형광 기반 센서(형광 단백질 또는 염료)의 혼합물을 캡슐화하고 원심분리 및/또는 크기 배제 크로마토그래피를 통해 통합되지 않은 구성 요소를 제거합니다. 대사 네트워크의 성능은 형광 판독을 통해 ATP/ADP 비율, 대사 산물 농도, 내부 pH 또는 기타 매개변수를 모니터링하여 실시간으로 측정됩니다. 100-400 nm 직경의 막단백질 함유 소포는 기존의 최적화된 절차를 사용하여 거대 단층 소포(GUV)로 전환할 수 있습니다. 이 접근법을 사용하면 용해성 구성 요소(효소, 대사 산물, 센서)를 마이크로미터 크기의 소포에 포함할 수 있으므로 생물반응기의 부피를 수십 배로 늘릴 수 있습니다. GUV를 포함하는 대사 네트워크는 광학 현미경으로 분석하기 위해 미세유체 장치에 갇혀 있습니다.
서론
상향식 합성생물학 분야는생명공학적 목적3,4 또는 생물의학적 목적5,6,7,8을 위한 (최소) 세포 1,2 및 대사 생물반응기를 구성하는 데 중점을 둡니다. 합성 세포의 구축은 연구자들이 토착 환경을 모방한 잘 정의된 조건에서 (막) 단백질을 연구할 수 있는 고유한 플랫폼을 제공하여 단백질 및 반응 네트워크의 창발적 특성과 숨겨진 생화학적 기능을 발견할 수 있도록 합니다9. 자율적으로 기능하는 합성 세포를 향한 중간 단계로, 대사 에너지 보존, 단백질 및 지질 합성, 항상성과 같은 살아있는 세포의 필수 기능을 포착하는 모듈이 개발되었습니다. 이러한 모듈은 삶에 대한 우리의 이해를 향상시킬 뿐만 아니라 의학8 및 생명공학10 분야에도 응용될 수 있는 잠재력을 가지고 있다.
막관통 단백질은 세포 안팎으로 분자를 운반하고, 신호를 보내고, 환경의 질에 반응하며, 수많은 생합성 역할을 하기 때문에 거의 모든 대사 네트워크의 중심에 있습니다. 따라서, 합성 세포에서 대사 모듈의 엔지니어링은 대부분의 경우 통합 및/또는 말초 막 단백질을 특정 지질과 높은 무결성(낮은 투과성)으로 구성된 막 이중층으로 재구성해야 합니다. 이러한 막 단백질을 다루는 것은 까다로우며 특정 지식과 실험 기술이 필요합니다.
인지질 소포 내에서 막 단백질을 재구성하기 위해 여러 가지 방법이 개발되었으며, 대부분 특정 단백질의 기능11,12, 조절13, 운동 특성14,15, 지질 의존성15,16 및/또는 안정성17을 연구하기 위한 목적으로 개발되었습니다. 이러한 방법에는 지질(18)이 있는 상태에서 세제-가용화 단백질을 수성 매체로 빠르게 희석하는 방법, 세제-가용화 단백질을 세제-불안정화된 지질 소포체와 함께 배양하여 세제를 제거하는 방법, 세제(들)를 폴리스티렌 비드(19)에 흡수하는 방법, 또는 투석 또는 크기 배제 크로마토그래피(20)에 의한 세제의 제거가 포함된다. 유기 용매는 예를 들어 유수계 간기(21)의 형성을 통해 지질 소포를 형성하는 데 사용되었지만, 대부분의 일체형 막 단백질은 이러한 용매에 노출될 때 비활성화됩니다.
우리 실험실에서는 주로 세제 흡수 방법으로 막 단백질을 재구성하여 대형 단층 소포(LUV)를 형성합니다19. 이 방법은 여러 막 단백질의 공동 재구성과 효소, 대사 산물 및 프로브22,23의 소포 내강에 캡슐화를 허용합니다. 막 단백질-함유 LUV는 막 단백질(26)의 완전성을 보존하기 위해 전기형성(24) 또는 겔 보조 팽창(gel-assisted swelling)25 및 특정 조건을 사용하여 수용성 성분의 캡슐화를 유무에 관계없이 거대-단층 소포(GUVs)로 전환될 수 있다.
이 논문은 L-아르기닌을 L-오르니틴으로 분해하여 ATP를 재생하는 평형외 대사 네트워크의 LUV에서 재구성을 위한 프로토콜을 제시합니다27. ATP의 형성은 인지질 합성을 위한 중요한 구성 요소인 글리세롤-3-포스페이트(G3P)의 생성과 관련이 있습니다22,28. 대사 경로는 아르기닌/오르니틴(ArcD)과 G3P/Pi 안티포터(GlpT)라는 두 개의 필수 막 단백질로 구성됩니다. 또한 ATP의 재활용을 위해 3가지 용해성 효소(ArcA, ArcB, ArcC)가 필요하며, GlpK는 L-아르기닌 분해에서 얻은 ATP를 사용하여 글리세롤을 글리세롤 3-인산으로 변환하는 데 사용됩니다(경로의 개략적인 개요는 그림 1 참조). 이 프로토콜은 지질 또는 단백질의 합성 또는 세포 분열을 위한 훨씬 더 복잡한 반응 네트워크의 미래 구축을 위한 좋은 출발점을 나타냅니다. 소포의 지질 조성은 다양한 일체형 막 단백질의 활성을 지원하며, 소포 27,29,30 안팎으로 다양한 분자를 수송하는 데 최적화되어 있다.
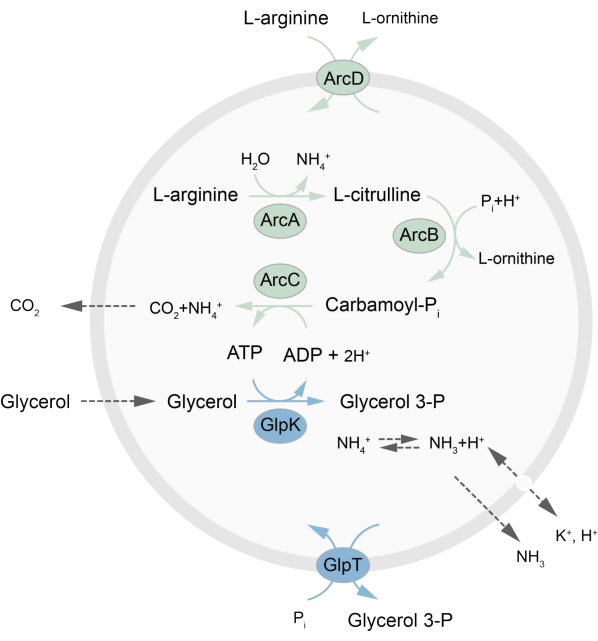
그림 1: ATP 생성과 글리세롤 3-포스페이트 합성 및 배설을 위한 경로 개요. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
요컨대, 정제된 막 단백질(도데실-β-D-말토사이드, DDM에 용해됨)을 Triton X-100으로 불안정화된 미리 형성된 지질 소포에 첨가하여 단백질을 막에 삽입할 수 있습니다. 세제 분자는 이후에 활성 폴리스티렌 비드를 첨가하여 (천천히) 제거되어 잘 밀봉된 프로테올리포좀이 형성됩니다. 그런 다음 용해성 성분을 소포에 추가하고 동결-해동 주기를 통해 캡슐화할 수 있으며, 이는 막 융합 과정에서 분자를 가둡니다. 얻어진 소포는 매우 이질적이며 많은 것이 다층입니다. 그런 다음 공극 크기가 400, 200 또는 100nm인 폴리카보네이트 필터를 통해 압출되어 보다 균일한 크기의 소포가 생성됩니다. 공극 크기가 작을수록 소포가 더 균질하고 단층류이지만 내부 부피가 더 작습니다. 통합되지 않은 단백질과 작은 분자는 크기 배제 크로마토그래피를 통해 외부 용액에서 제거됩니다. proteoLUV는 겔 보조 팽창을 통해 마이크로미터 크기의 소포로 전환될 수 있으며, 이러한 proteoGUV는 현미경 특성 분석 및 조작을 위해 미세유체 칩에 수집되고 포집됩니다. 그림 2 는 전체 프로토콜의 개략적인 개요를 보여줍니다.
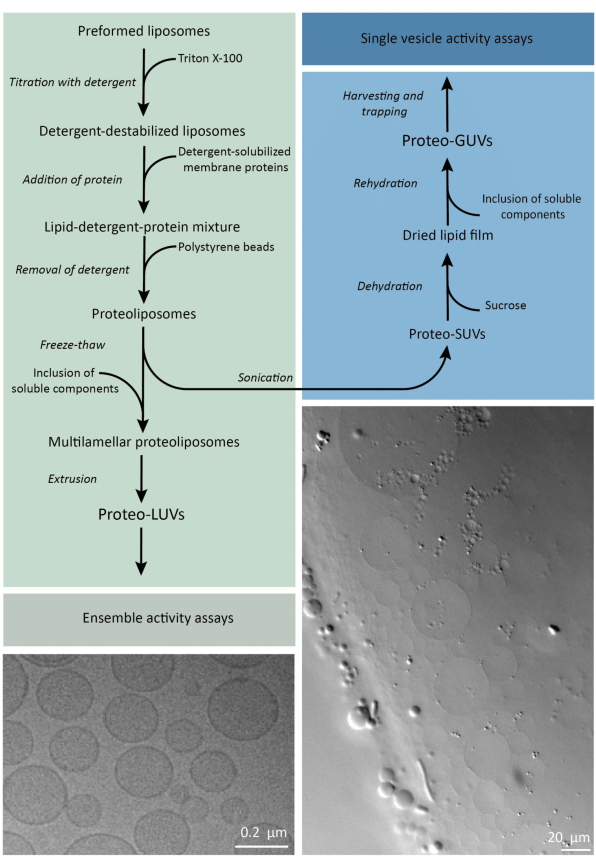
그림 2: 마이크로미터 미만(LUV) 및 마이크로미터 크기(GUV)의 지질 소포에서 막 단백질을 재구성하고 효소 및 수용성 성분을 캡슐화하기 위한 프로토콜 개요. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
재구성 및 캡슐화 프로토콜은 잘 작동하고 단백질의 기능은 유지되지만 proteoLUV와 proteoGUV는 크기가 이질적입니다. 미세유체역학(Microfluidic) 접근법31,32는 크기가 더 균질한 마이크로미터 크기의 소포를 형성할 수 있지만, 이중층의 잔류 용매가 단백질을 비활성화하기 때문에 일반적으로 막 단백질의 기능적 재구성이 불가능합니다. proteoLUV의 크기는 100nm에서 400nm까지 다양하며, 낮은 농도의 효소에서는 캡슐화로 인해 불완전한 대사 경로(확률적 효과, 그림 3 참조)를 가진 소포가 생성될 수 있습니다. LUV는 ATP 및 G3P와 같은 빌딩 블록의 생산을 위해 여기에서 볼 수 있듯이 특정 대사 모듈을 구성하는 데 이상적입니다. 이러한 proteoLUV는 잠재적으로 GUV에 캡슐화될 수 있으며 숙주 소포를 위한 소기관과 같은 구획 역할을 할 수 있습니다.
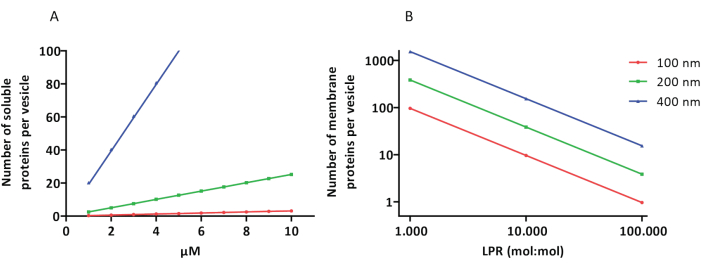
그림 3: 직경이 100, 200 또는 400nm인 소포당 분자 수. (A) 캡슐화된 단백질(효소, 프로브)이 1-10μM 범위에 있을 때. (B) 재구성은 지질당 1 - 1,000개, 1 - 10,000개, 1 - 100,000개의 막 단백질(mol/mol)에서 수행됩니다. 우리는 분자가 표시된 농도로 캡슐화되고 이러한 단백질 대 지질 비율로 막에 통합된다고 가정합니다. 일부 효소의 경우, 우리는 그들이 막에 결합하여 소포의 겉보기 농도를 증가시킬 수 있음을 보았습니다. 약어: LPR = Lipid-Protein-Ratio 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
1. 일반적인 준비 사항
- 화학 물질
- 미리 형성된 리포좀을 만들기 위해 CHCl3 에서 지질(분말 형태)을 25mg/mL로 용해시킵니다.
알림: 신선한 지질 스톡을 준비하는 것이 바람직하지만 스톡 용액은 -20°C에서 몇 주 동안 보관할 수도 있습니다. 분말 형태의 지질로 작업하는 것이 CHCl3에 이미 용해된 지질을 사용하는 것보다 더 정확합니다. CHCl3 는 유리 피펫 및/또는 주사기를 사용하여 처리해야 하며 CHCl3 는 플라스틱을 용해하므로 유리 용기에 보관해야 합니다. - 캡슐화 절차를 위한 소분자(뉴클레오티드, 아미노산, 형광 프로브)를 50mM KPi(완충액 A, 표 1 참조)에 용해시키고 pH를 7.00 ± 0.01로 조정합니다. 인산 마그네슘 침전물의 형성을 피하기 위해 MgCl2 를 탈 이온수에 용해시킵니다.
참고: 원액은 -20°C에서 몇 주 동안 보관할 수 있으며, DTT는 예외로 실험 당일에 신선하게 준비됩니다. - 이오단(예: 발리노마이신, 니게리신)을 100-500 μM의 스톡 농도로 DMSO 또는 EtOH에 용해시킵니다. -20 °C에서 몇 주 동안 보관하십시오. 증발을 피하십시오.
참고: DMSO는 휘발성이 아니므로 EtOH보다 선호됩니다. 플라스틱 바이알 대신 유리를 사용하여 이오단이 바이알 표면에 접착되지 않도록 합니다.
- 미리 형성된 리포좀을 만들기 위해 CHCl3 에서 지질(분말 형태)을 25mg/mL로 용해시킵니다.
- 버퍼
- 실험 당일에 새로운 버퍼를 준비합니다(표 1). 24시간 이상 보관하지 마십시오.
- 용해성 단백질의 정제
- 이전에 설명한 대로 ArcA, ArcB, ArcC(ArcC1이라는 특정 변형 사용), PercevalHR 및 GlpK를 표현합니다 27,28,33. 세포 용해 완충액에 10% v/v 글리세롤을 추가하면 단백질의 안정성이 향상됩니다. 27,28,33 및 직후에 보고된 바와 같이 용해성 단백질을 정제한다.
- 얼음물 수조에서 10mL 세포 용해물(~5g 습식 중량)을 해동합니다. 그 동안 탈이온수(12CV)와 완충액 B(4CV)를 사용하여 중력 흐름 컬럼(20mL 용량)에 Ni2+-Sepharose 수지 2mL(1CV)를 적용하여 세척합니다. 해동 된 용해물을 얼음으로 옮기십시오. 달리 명시되지 않는 한 얼음 위에서 작업하십시오.
- 해동된 용해물에 최종 농도 10mM의 이미다졸을 첨가한 다음 용액을 중력 흐름 컬럼에 붓습니다. 4 °C에서 1시간 동안 부드러운 견과류로 배양합니다.
- 1시간 후 플로우 스루를 버리고 버퍼 C(20CV)로 수지를 세척합니다.
- 완충액 D로 단백질을 용리합니다. 첫 번째 용리 단계에 60% CV를 사용한 다음 40% CV를 4-6단계로 사용합니다.
- 단백질 농도를 측정하고 Na-EDTA를 최종 농도 5mM까지 첨가합니다.
- 냉장 탁상용 원심분리기에서 정제된 단백질을 스핀다운합니다(최대 속도, 10분, 4°C). Buffer E를 사용하여 크기 배제 크로마토그래피로 정제합니다. 용출 분획을 함께 모으고 컷오프가 30kDa인 농축 필터를 사용하여 ~10mg/mL로 농축합니다. 적절한 크기(~ 20μL)의 부분 표본을 준비하고 액체 질소로 급속 동결한 다음 나중에 사용할 수 있도록 -80°C에서 보관합니다.
참고: 캡슐화에 필요한 부피를 최소화하기 위해 효소를 50-100μM로 농축하는 것이 중요합니다.
- 막 단백질의 정제
- 앞서 설명한 대로 ArcD 및 GlpT를 과도하게 표현합니다 22,27,33. 세포 용해 완충액에 10% v/v 글리세롤을 추가해야 합니다. ArcD 정제를 위해 완충액에 2mM 환원제(예: DTT)를 포함하십시오. Ni2+-Sepharose 크로마토그래피로 친화성 태그 단백질을 정제합니다.
- 조막 소포(총 막 단백질 10-20mg)의 부분 표본을 얼음물 수조에서 해동합니다.
알림: 해동한 후에는 달리 명시되지 않는 한 항상 얼음 위에서 작업하십시오. 이 섹션에서 사용되는 버퍼에 대해서는 표 1 을 참조하십시오. - 멤브레인 소포를 완충액 F(ArcD) 또는 완충액 G(GlpT)에 최종 부피 6mL에 추가합니다. 부드러운 너트 배합으로 4°C에서 1시간 동안 샘플을 배양합니다.
- 초원심분리(337,000 × g, 30분, 4°C)로 멤브레인 파편에서 용해된 멤브레인 단백질을 분리합니다. 그 동안 0.25mL(1CV)의 Ni2+-Sepharose 수지를 탈이온수(40CV)와 20CV의 완충액 H(ArcD) 또는 완충액 I(GlpT)와 함께 중력 흐름 컬럼(10mL 용량)에 적용합니다.
- 가용화된 단백질을 중력 흐름 컬럼에 붓고 이미다졸을 최종 농도인 10mM까지 첨가합니다. 4 °C에서 1 시간 동안 부드러운 견과류로 배양합니다.
- 1시간 후 플로우스루를 버리고 버퍼 J(ArcD) 또는 버퍼 K(GlpT) 20CV로 수지를 세척합니다.
- Buffer L(ArcD) 또는 Buffer M(GlpT)을 사용하여 60% CV(1차) 및 40% CV(2nd-6차) 단계에서 막 단백질을 용리합니다.
- 단백질 농도를 측정하고 섹션 2.2를 계속합니다. 막 재구성을 위해.
NOTE: 막 재구성이 유사한 정제를 생성하기 때문에 크기 배제 정제가 멤브레인 단백질에 대해 반드시 수행되는 것은 아닙니다. 1.4 및 2.2 단계는 1 일 작업 만에 수행 할 수 있습니다. 아침에 단백질 정제(1.4단계)로 시작하여 오후에 재구성(2.2단계)을 계속합니다. 재구성은 다음 날에 종료됩니다(자세한 내용은 섹션 2.2 참조). 중지 지점: 정제 및 DDM 용해된 ArcD 및 GlpT는 나중에 사용하기 위해 -80 oC에서 보관할 수 있지만 모든 막 단백질에 대해서는 사실이 아닙니다. 적절한 크기(50-200 μL)의 부분 표본을 준비하고 액체 질소로 급속 동결한 후 나중에 사용할 수 있도록 -80 °C에서 보관합니다. 이 단백질은 10% v/v 글리세롤이 있는 -80°C에서 보관할 때 수개월 동안 활성입니다.
- 조막 소포(총 막 단백질 10-20mg)의 부분 표본을 얼음물 수조에서 해동합니다.
- 앞서 설명한 대로 ArcD 및 GlpT를 과도하게 표현합니다 22,27,33. 세포 용해 완충액에 10% v/v 글리세롤을 추가해야 합니다. ArcD 정제를 위해 완충액에 2mM 환원제(예: DTT)를 포함하십시오. Ni2+-Sepharose 크로마토그래피로 친화성 태그 단백질을 정제합니다.
- 패시베이션 목적을 위한 β-카제인의 준비
- 탈이온수 20mL에 β-카제인 100mg을 재현탁하고 β-카제인이 완전히 용해될 때까지 1M NaOH로 적정합니다. 그런 다음 1M 아세트산을 첨가하여 pH를 7.0으로 조정하고 탈이온수로 부피를 50mL로 채웁니다. 0.2μm 주사기 필터를 통해 용액을 여과하고 500μL의 부분 표본을 만듭니다.
참고: β-카제인은 -20°C에서 6개월 동안 보관할 수 있습니다. β-카제인 응집체가 미세유체 칩을 막는 것을 방지하기 위해 사용하기 전에 β-카제인을 다시 여과하는 것이 좋습니다.
- 탈이온수 20mL에 β-카제인 100mg을 재현탁하고 β-카제인이 완전히 용해될 때까지 1M NaOH로 적정합니다. 그런 다음 1M 아세트산을 첨가하여 pH를 7.0으로 조정하고 탈이온수로 부피를 50mL로 채웁니다. 0.2μm 주사기 필터를 통해 용액을 여과하고 500μL의 부분 표본을 만듭니다.
| 완충기 | 구성 | ||
| 버퍼 A | 50mM KPi pH 7.0 | ||
| 버퍼 B | 50 mM KPi, 100 mM KCl, 10% v/v 글리세롤, 10 mM 이미다졸, pH 7.5 | ||
| 버퍼 C | 50 mM KPi, 100 mM KCl, 10% v/v 글리세롤, 50 mM 이미다졸, pH 7.5 | ||
| 버퍼 D | 50 mM KPi, 100 mM KCl, 10% v/v 글리세롤, 500 mM 이미다졸, pH 7.5 | ||
| 버퍼 E | 50 mM KPi, 100 mM KCl, 10% v/v 글리세롤, pH 7.0 | ||
| 버퍼 F | 50 mM KPi, 100 mM KCl, 0.5% w/v DDM, 10% v/v 글리세롤, 2 mM β-메르캅토에탄올, pH 7.5 | ||
| 버퍼 G | 50 mM 트리스-HCl, 0.5 % w / v DDM, 20 % v / v 글리세롤, pH 8 | ||
| 버퍼 H | 50 mM KPi, 100 mM KCl, 0.02% w/v DDM, 10% v/v 글리세롤, 2 mM β-메르캅토에탄올, 10 mM 이미다졸, pH 7.5 | ||
| 버퍼 I | 50 mM Tris-HCl, 0.04 % w / v DDM, 20 % v / v 글리세롤, 10 mM 이미 다졸, pH 8.0 | ||
| 버퍼 J | 50 mM KPi, 200 mM KCl, 0.02% w/v DDM, 10% v/v 글리세롤, 2 mM β-메르캅토에탄올, 50 mM 이미다졸, pH 7.5 | ||
| 버퍼 K | 50 mM 트리스-HCl, 0.04 % w / v DDM, 20 % v / v 글리세롤, 50 mM 이미 다졸, pH 8 | ||
| 버퍼 L | 50 mM KPi, 200 mM KCl, 0.02% w/v DDM, 10% v/v 글리세롤, 2 mM β메르캅토에탄올, 500 mM 이미다졸, pH 7.5 | ||
| 버퍼 M | 50 mM 트리스-HCl, 0.04 % w / v DDM, 20 % v / v 글리세롤, 500 mM 이미 다졸, pH 8 | ||
| 버퍼 N | 50mM KPi, 58mM NaCl, 2mM DTT, pH 7.0 | ||
| 버퍼 O | 50 mM KPi, 0.5 mM L-오르니틴, 10 mM Na-ADP, 10 mM MgCl2, 2 mM DTT, pH 7.0 | ||
| 버퍼 P | 50 mM KPi pH 7.0, 2 mM DTT, x mM 포도당(x는 외부 및 내부 매체의 삼투압에 따라 다양함) | ||
| 버퍼 Q | 50 mM KPi pH 7.0, 0.5 mM 자당, 2 mM DTT | ||
| 버퍼 R | 50mM KPi pH 7.0, 2mM DTT, 10mM L-아르기닌, x mM 포도당 | ||
표 1: 이 프로토콜에 사용된 버퍼.
2. 프로테올리포좀(Proteoliposomes): 정제된 막 단백질을 미리 형성된 지질 소포(lipid vesicles)로 재구성
- 1일차
- 미리 형성된 지질 소포의 준비
- 막 단백질의 요구 사항에 따라 지질 조성(예: 합성 인지질, E. coli 극성 지질)을 선택합니다.
참고: DOPE, DOPG 및 DOPC(25:25:50 mol%)의 혼합물이 좋은 시작점이지만 일부 단백질에는 스테롤 또는 카디올리핀이 필요할 수 있습니다. 효모 원형질막 단백질의 경우 디올레오일30 대신 팔미토일-올레오일 지질을 포함합니다. DOPE, DOPG 및 DOPC(25:25:50 mol%) 혼합물은 ArcD 및 GlpT의 재구성에 충분합니다. - 원하는 지질 (CHCl3에 용해)을 혼합하고 지질 막이 형성 될 때까지 회전 증발기에서 CHCl3 를 증발시킵니다. CHCl3과 동일한 부피의 디 에틸 에테르를 첨가하여 지질을 세척하십시오. 디 에틸 에테르를 증발시키고 건조 지질 필름을 얻습니다.
- 수성 매질에서 지질을 총 지질의 20mg/mL로 재현탁시킵니다(완충액 A). 전체 볼륨의 절반부터 시작하여 부드럽게 흔듭니다. 그런 다음 지질을 적절한 크기의 깨끗한 튜브나 병으로 조심스럽게 옮깁니다. 플라스크에 새로운 완충액 A를 추가하고 절차를 반복하여 나머지 지질을 용해시키고 새 용기로 옮깁니다. 최종 농도인 20mg/mL에 도달하기 위해 추가 버퍼 A를 추가합니다.
- 프로브 초음파 발생기를 사용하여 재현탁 지질을 초음파 처리합니다. 직경이 6mm 인 초음파 발생기 팁에 대해 4 μm 강도, 70 % 진폭, 5 초 켜기, 45 초 끄기, 16 사이클 매개 변수를 사용하십시오. 초음파 처리에 의한 과열을 피하기 위해 EtOH가 포함 된 얼음물 욕조에 지질을 담그십시오.
- 초음파 처리 된 샘플 (50mL 원심 분리 튜브에서 40mL의 부피)을 액체 질소에 급속 냉동하고 실온의 수조에서 샘플을 해동합니다. 한 번 반복하십시오. 그런 다음 원하는 부피(예: 1.5mL 플라스틱 튜브에 담긴 1mL 또는 20mg의 총 지질)로 리포좀을 분취합니다.
중지 지점: 이 시점에서 절차를 중지할 수 있습니다. 각 부분 표본을 한 번 더 급속 동결하고(세 번째 주기) 최대 몇 개월 동안 액체 질소에 보관합니다. 액체 질소가 빠르게 끓을 때 튜브가 폭발하지 않도록 바늘로 튜브 뚜껑을 두 번 뚫는 주의하십시오.
- 막 단백질의 요구 사항에 따라 지질 조성(예: 합성 인지질, E. coli 극성 지질)을 선택합니다.
- 미리 형성된 지질 소포의 준비
- 2일차
- 정제된 막 단백질을 미리 형성된 리포좀으로 재구성
- 리포솜 1분취액(총 지질 20mg)을 실온의 수조에서 해동합니다. 그 동안, 선택한 필터(예: 폴리카보네이트, 400nm의 공극 직경)를 적용하여 압출기를 준비합니다. 압출기를 버퍼 A와 사전 평형화합니다. 그리고 해동된 리포좀('유백색 용액')을 압출기에 넣고 필터를 통해 13번 통과시킵니다. 압출된 리포좀(현재 큰 단층 소포체; "불투명 용액")을 적절한 크기(예: 15mL)의 유리 또는 플라스틱 용기에 담습니다. 2mM DTT가 보충된 Buffer A를 사용하여 리포좀을 4mg/mL로 희석합니다.
- 4mg/mL 리포좀 1mL를 1mL의 투명 큐벳에 전달합니다. 분광 광도계에서 540nm에서 초기 광학 밀도를 측정합니다. 측정된 샘플을 다시 붓고 50μL의 10% v/v Triton X-100을 리포좀에 추가합니다.
참고: 10% Triton-X100 50 μL의 적정 부피는 5 mL 부피의 지질 20 mg에 적합합니다. Triton X-100을 추가하면 지질이 ~5% 희석됩니다. 다양한 양의 리포좀으로 작업할 때 적정량을 조정하십시오. 안정적인 광학 밀도 신호를 위해 실온에서 Triton X-100으로 리포좀을 적정하십시오. - 2.2.1.2 단계를 반복하고 최대 광학 밀도에 도달 할 때 (Rsat). 약 60% Rsat 의 광학 밀도에 도달할 때까지 적정을 계속 진행합니다(그림 4). 세제로 불안정해진 소포를 유리/플라스틱 튜브에 다시 붓고(최종 부피는 이제 약 5.2mL) 샘플을 얼음으로 옮긴 다음 냉각시킵니다.
- 정제된 막 단백질을 불안정화된 리포좀에 추가하여 원하는 지질 대 단백질 비율(w/w)에 도달합니다. 400:1에서 100:1 w/w의 비율을 사용하십시오. ArcD와 GlpT는 모두 ~ 55kDa의 분자량을 갖기 때문에 400 : 1 w / w 의 지질 대 단백질 비율은 단백질 당 ~ 30,000 개의 지질에 해당하고 직경이 400 nm 인 소포 당 ArcD 및 GlpT의 ~ 50 분자에 해당합니다.
참고: 여기서는 400:1 w/w를 사용하며, 이는 지질 20mg당 각 단백질 50μg에 해당합니다. - 4°C에서 15분 동안 샘플을 nutate하여 막 단백질이 불안정한 리포솜 막에 삽입될 수 있도록 합니다.
- 세제를 제거하려면 제조업체의 지침에 따라 준비된 건조 폴리스티렌 비드 200mg을 추가하십시오. 4 °C에서 15분 더 가열합니다.
참고: 200mg의 건조 비드는 20mg의 지질에 적합하지만 다른 샘플 크기를 사용하는 경우 조정해야 합니다. - 2.2.1.6 2x 단계를 반복하여 총 3개의 폴리스티렌 비드를 추가합니다. 그런 다음 4 °C에서 부드러운 견과류로 밤새 배양합니다.
- 정제된 막 단백질을 미리 형성된 리포좀으로 재구성
- 3일차
- 2.2.1.6 단계를 반복하십시오. 그러나 이번에는 4 °C에서 1 시간 동안 nutate.
- 얼음 위의 빈 6.5mL 초원심분리 튜브 위에 빈 중력 흐름 컬럼(10mL 용량)을 고정합니다. 샘플을 컬럼에 붓고 초원심분리 튜브에서 프로테오리포좀을 수집합니다(비드는 컬럼에 유지됨).
- 2mM DTT가 보충된 0.5mL의 완충액 A로 비드를 세척하고 초원심분리 튜브에 여과액을 수집합니다.
- 초원심분리(337,000 × g, 30분, 4 oC)로 프로테오리포좀을 농축합니다. 2mM DTT가 보충된 완충액 A에서 총 200μL(100mg의 지질/mL)로 프로테올리솜을 재현탁시킵니다. 원심분리 후 소포의 건조 부피는 ~ 40 내지 120 μL27입니다. 원하는 크기의 부분 표본으로 분할합니다(예: 총 지질 6.66mg의 부분 표본 3개).
참고: 부분 표본 크기는 임의적이지만 이후 단계에서 펠릿 크기에 영향을 미칩니다(3.2.3.1단계 참조). 중지 지점: 여기에서 절차를 중지할 수 있습니다. 각 부분 표본을 급속 냉동하고 최대 몇 주 동안 액체 질소에 보관합니다. 액체 질소가 빠르게 끓을 때 튜브가 폭발하지 않도록 바늘로 튜브 뚜껑을 두 번 뚫도록 주의하십시오.
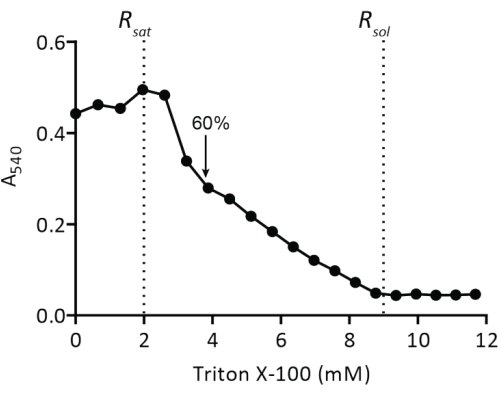
그림 4: Triton X-100을 사용한 사전 성형된 리포좀의 적정. 5mg의 지질/mL의 리포좀을 폴리카보네이트 필터(400nm)를 통해 50mM KPi(pH 7.0)로 압출한 다음 Triton X-100으로 적정합니다(프로토콜 단계 2.2.1.2). 소포의 탁도는 A540에서 측정됩니다. 화살표는19에 설명된 바와 같이 소포가 막 단백질의 자발적 삽입을 위해 충분히 불안정해지는 Triton X-100 농도를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
3. 서브미크론 크기의 소포에서 ATP 재활용 및 글리세롤 3-P 합성을 위한 대사 네트워크 캡슐화
- 1일차
- 구성 요소의 혼합
- 표준 캡슐화의 경우 최종 부피 200μL(총 지질 33.33mg/mL)에 66.6μL의 프로테올리포좀을 사용합니다. 원하는 농도에 도달하는 데 필요한 각 성분(효소, 보조 인자)의 부피를 계산하고, 이러한 성분을 단백질 올리포좀에 추가하고, 완충액 A를 사용하여 부피를 200μL로 조정합니다(표 2).
참고: 단백질 농도는 실험 설정에 따라 조정할 수 있습니다. 그러나, 원치 않는 확률적 효과를 피하기 위해 각 효소의 여러 사본(>10)이 소포당 평균적으로 존재한다는 점에 주의해야 합니다. 1μM > 농도는 일반적으로 안전합니다. 직경이 400nm인 소포의 1μM은 약 20개의 복사본에 해당합니다(그림 3). - 피펫 완충액 A를 빈 1.5mL 튜브에 넣고 DTT, Na-ADP, MgCl2, L-오르니틴(및 내부 pH 측정에 필요한 경우 피라닌)을 추가합니다. 다음으로 효소를 넣고 부드럽게 섞는다. 미리 형성된 프로테오리포솜 위에 용액을 추가하고 저속으로 잠시 소용돌이칩니다.
참고: 마그네슘 인산염 침전물의 원치 않는 형성을 피하기 위해 MgCl2 전에 Na-ADP를 첨가하는 것이 중요합니다. 점성 용액의 적절한 혼합을 위해 소용돌이가 필요합니다. 그러나 단백질의 기계적 손상을 방지하기 위해 지속 시간과 속도를 최소화하십시오. PercevalHR과 피라닌은 스펙트럼이 겹치기 때문에 함께 캡슐화할 수 없습니다.
- 표준 캡슐화의 경우 최종 부피 200μL(총 지질 33.33mg/mL)에 66.6μL의 프로테올리포좀을 사용합니다. 원하는 농도에 도달하는 데 필요한 각 성분(효소, 보조 인자)의 부피를 계산하고, 이러한 성분을 단백질 올리포좀에 추가하고, 완충액 A를 사용하여 부피를 200μL로 조정합니다(표 2).
- 내부 삼투압의 결정
- 단계 3.1.1.1에 설명된 대로 프로테오리포좀이 없는 50μL 용액을 준비하고 어는점 삼투압계로 삼투압을 측정합니다.
- 완충액(50mM KPi pH 7.0)과 다양한 농도의 염(예: NaCl 또는 NaCl) 또는 설탕을 사용하여 검량선을 준비합니다. 내부 삼투압과 일치하는 삼투압 농도를 측정합니다(버퍼 N).
참고: 멤브레인 투과성 구성 요소(예: 글리세롤)는 내부 삼투압을 일치시키는 데 사용할 수 없습니다. 글리세롤 함유 완충액(예: 완충액 E)에 용해된 단백질의 경우, 글리세롤 없이 동일한 완충액을 사용해야 합니다. 이등삼투성 외부 완충액의 준비를 위해 선택한 삼투질은 막이 불침투성이어야 하며 대사 네트워크를 방해하지 않아야 합니다.
- 동결-해동
- 프로테오리포좀을 용해성 성분과 함께 급속 동결(액체 질소)하고 약 10°C의 물-얼음 수조에서 해동합니다.
- 3.1.3.1단계를 총 5회 반복합니다.
중지 지점: 여기에서 절차를 중지할 수 있습니다. 마지막 해동 단계를 건너뛰고 냉동 샘플을 액체 질소에 1-3일 동안 보관합니다. 액체 질소를 빠르게 끓일 때 튜브가 폭발하지 않도록 바늘로 튜브 뚜껑을 2번 뚫도록 주의하십시오. 지질 산화를 최소화하기 위해 -80°C 이상에서 액체 질소에 보관하는 것이 좋습니다.
- 구성 요소의 혼합
- 2일차
- 압출 성형
알림: 모든 압출 단계는 실온에서 수행되며, 그렇지 않으면 기밀 주사기가 누출됩니다.- 선택한 필터(예: 폴리카보네이트, 400nm의 공극 직경)를 적용하여 압출기를 준비합니다. 소포의 캡슐화에 사용된 것과 동일한 완충액 및 대사 산물(예: 완충액 O에 0.1mM 피라닌을 더한 값)을 포함하는 용액으로 압출기를 세척합니다.
참고: 염료가 압출기 표면에 달라붙어 이후 샘플에서 오염을 유발할 수 있으므로 피라닌이 포함된 프로테올리포좀을 로딩하기 위해 전용 압출기를 사용하십시오. - 캡슐화 혼합물을 압출기에 넣고 필터 13x를 통과시킵니다. 1.5mL 튜브에 압출된 용액을 수집합니다.
- 선택한 필터(예: 폴리카보네이트, 400nm의 공극 직경)를 적용하여 압출기를 준비합니다. 소포의 캡슐화에 사용된 것과 동일한 완충액 및 대사 산물(예: 완충액 O에 0.1mM 피라닌을 더한 값)을 포함하는 용액으로 압출기를 세척합니다.
- 크기 배제 크로마토그래피(옵션)
참고: 이 단계는 크기 배제 크로마토그래피로 피라닌과 같은 염료와 같은 외부 분자를 제거하기 위해 수행됩니다. 염료가 시스템에 존재하지 않고 다른 구성 요소가 낮은 농도에서 간섭하지 않는 경우(소포는 나중에 초원심분리로 세척됨) 3.2.2단계. 건너뛸 수 있습니다.- Sephadex G-75 레진을 재수화하고 유리 기둥(길이 22cm, 너비 1.5cm)에 붓습니다. 수지를 과도한 외부 완충액(예: 완충액 N)과 평형화합니다.
- 3.2.1.2단계에서 압출된 프로테올리포좀을 사전 평형화된 크기 배제 크로마토그래피 컬럼에 로드하고 외부 완충액의 중력 흐름을 적용합니다. 공극 부피(약 7mL)를 버립니다. 그런 다음 1mL 부분 표본 10개를 수집합니다. 프로테오리포솜 함유 부분 표본을 UV 램프에 짧게 노출시켜 시각화합니다. 대부분의 프로테올리포좀(2-4mL)을 포함하는 분획을 합칩니다.
- 세척 및 재현탁액
- 압출된 프로테올리포좀을 초원심분리로 세척합니다. 6.5mL 초원심분리 튜브에 5.8mL의 완충액 N을 채우고 압출된 샘플을 그 위에 바릅니다. 크기 배제 크로마토그래피를 수행한 경우 튜브에 통합 용출 샘플(2-4mL)을 채우고 최종 부피 6mL에 버퍼 N을 추가합니다.
- 337,000 × g, 30분, 4 °C에서 원심분리기 상층액을 버리고 펠릿을 만지지 않도록 주의하면서 먼지가 없는 티슈로 초원심분리 튜브를 완전히 건조시킵니다. 펠릿을 소량의 완충액 N(200 μL)에 재현탁시킵니다. 펠릿이 완전히 재현탁되면 버퍼 N으로 튜브를 최대 6mL까지 채웁니다.
알림: 펠릿을 재현탁하는 데는 시간이 걸리므로 주의해서 수행해야 합니다. - 크기 배제 크로마토그래피를 수행하지 않는 한 3.2.3.1-3.2.3.2 2x 단계를 반복하여 총 3회 세척합니다(이 경우 하나의 원심분리 단계로 충분함). 궁극적으로, 적절한 부피의 완충액 N을 첨가하여 펠릿을 원하는 농도(예: 총 지질 5.55mg/mL)로 재현탁시킵니다.
중지 지점: 프로테올리포좀은 즉시 사용하거나 4 °C에서 최소 48시간 동안 보관할 수 있습니다. 초원심분리 튜브의 크기는 표본 크기에 따라 선택해야 합니다. 총 지질 6.66mg의 펠릿에는 6.5mL 튜브가 적합합니다. 3 x 6 mL의 완충액에 대해 200 μL의 프로테오리포좀(총 33.33 mg의 지질/mL, 건조 펠릿 부피 ~40 μL)28 을 세척하면 각 세척 단계마다 외부 성분이 100배로 희석됩니다. 크기가 다른 튜브를 사용하는 경우 그에 따라 세척 횟수를 조정하는 것이 바람직합니다.
- 압출 성형
- 3일차
- 형광에 의한 ATP 합성 검출
- 창이 3 x 5mm이고 내부 부피가 100mL인 검은색 석영 큐벳에서 반응 성분을 최종 부피 120μL(표 3)로 혼합합니다.
참고: 전기화학적 이온 구배를 분산시키기 위해 이온단을 추가할 수 있습니다. 발리노마이신(valinomycin)과 니게리신(nigericin)의 혼합물(각각 1μM)은 모든 양성자 및 칼륨 구배를 효과적으로 소멸시킵니다. - 30°C로 설정된 형광측정기에서 시료를 예열하고 PercevalHR의 여기 스펙트럼(여기 400-520 nm, 대역폭 5 nm, 방출 550 nm, 대역폭 5 nm)을 획득합니다. 프로브 신호가 일정하면 ATP의 재활용이 글리세롤 3-인산염의 합성과 결합될 때 L-아르기닌(5-10mM)과 글리세롤(400μM)을 과도하게 첨가하여 대사 네트워크를 시작합니다. 시간 경과에 따른 반응을 따르십시오.
- 창이 3 x 5mm이고 내부 부피가 100mL인 검은색 석영 큐벳에서 반응 성분을 최종 부피 120μL(표 3)로 혼합합니다.
- 데이터 분석
- 비율 F500/F430 을 ATP/ADP 비율의 정성적 지표인 시간 함수로 플로팅합니다. ATP 형성에 대한 보다 정량적인 평가를 위해 프로테오올리솜에서 보정 곡선을 구성하거나 보완적인 접근법(예: 화학발광28에 의한 ATP 정량화)을 사용합니다.
- 형광에 의한 ATP 합성 검출
| 구성 요소 | 최종 농도 |
| 버퍼 A | 50mM KPi pH 7.0 |
| 디에이티(DTT) | 2의 mM |
| Na-ADP (나-ADP) | 10 밀리미터 |
| 마그네슘화합물 2 | 10 밀리미터 |
| L-오르니틴 | 0.5 밀리미터 |
| 형광 프로브(PercevalHR 또는 피라닌) | 각각 5.8 μM 또는 0.1 mM |
| ArcA(아르기닌 데이미나아제) | 1 마이크로미터 |
| ArcB(오르니틴 카르바모일전이효소) | 2 μM의 |
| ArcC1(카바메이트 키나아제) | 5 마이크로미터 |
| GlpK(글리세롤 키나아제) | 1.6 마이크로미터 |
| 프로테올리포좀(Proteoliposome) | 33.33mg/mL 총 지질 |
표 2: 캡슐화 구성 요소. 구성 요소는 추가 순서대로 나열됩니다. 용해성 단백질은 완충액 E에 있습니다. 다른 모든 성분(탈이온수에서 MgCl2 제외)은 버퍼 A에 있습니다.
| 구성 요소 | 최종 농도 |
| 버퍼 K | 50mM KPi pH 7.0, 58mM NaCl, 2mM DTT, pH 7.0 |
| 프로테올리포좀(지질 5.55mg/mL) | 지질 2.7mg/mL |
| 이오노포레스(valinomycin, nigericin) | 각각 1 μM |
표 3: 실험 조건. 구성 요소는 추가 순서대로 나열됩니다. 프로테오리포좀은 완충액 N에, 이온단은 DMSO 또는 EtOH에 있습니다.
4. 마이크로미터 크기의 소포를 위한 대사 네트워크 상향 조정
- 1일차
- 미세유체 칩 준비
참고: 이 실험은 Robinson et al.34가 개발한 미세유체 장치를 사용합니다. 미세유체 칩의 다른 설계는35,36,37 사용 가능하며 이 프로토콜에서 쉽게 구현될 수 있습니다.- 200μL 피펫 팁을 바닥에서 1/3 정도 자르고 팁의 하단 부분을 사전 제작된 미세유체 트래핑 장치에 삽입합니다.
- 칩의 입구 저장소에 400μL의 β-카제인 용액(2mg/mL, 1.5단계 참조)을 추가하고 이 단계에서 공기가 유입되지 않도록 주의합니다. 96웰 플레이트 버킷을 놓고 탁상용 원추형 튜브 원심분리기에 실험실 조직을 추가합니다. 칩을 조직 위에 놓고 900× g 에서 6분 동안 원심분리하여 미세유체 칩의 패시베이션을 허용합니다. 원심분리 단계 후, 액체 레벨은 미세유체 칩의 입구 저장소와 출구 팁에서 동일해야 합니다. 칩의 누출을 확인하십시오. β-카제인 용액을 미세유체 칩에 최소 30분 동안 배양합니다.
- 공기를 주입하지 않고 대부분의 패시베이션 용액을 제거하고 400μl의 세척 완충액(완충액 P)을 추가합니다. 96웰 플레이트 버킷에 칩을 놓고 900× g 에서 6분 동안 원심분리기를 놓습니다. 사용할 때까지(최대 4시간 동안) 칩을 세척 용액에 그대로 두십시오.
- 미세유체 칩 준비
- proteo-GUV 제조를 위한 겔 준비
참고 : 다음 설명은25,38에서 발췌 및 조정되었습니다.- 저겔화 온도(LGT)의 0.5%(w/w)를 전자레인지에서 용액을 가열하여 탈이온수에 용해시킵니다. 아가로스가 완전히 녹았는지 확인하고 용액을 끓이지 마십시오. 더 사용할 때까지 아가로스를 50°C에서 유지하십시오.
알림: 용해된 아가로스는 실온에서 몇 주 동안 보관할 수 있습니다. 아가로스를 재사용하려면 전자레인지를 사용하여 젤을 녹이기만 하면 됩니다. - 두 개의 대물렌즈 슬라이드를 가져와서 슬라이드에 스페이서의 윤곽을 그립니다. 고산소 플라즈마를 1분 동안 사용하여 플라즈마 청소로 슬라이드를 친수성으로 만듭니다.
- 아가로스(~500 μL)로 완전히 덮일 때까지 슬라이드 위에 LGT 아가로스를 추가합니다. 그런 다음 슬라이드를 90 ° 각도로 기울이고 여분의 아가로스를 조직에 배출합니다. 슬라이드를 50°C에서 30분 동안 그대로 두십시오.
- 액체 질소(섹션 3)에 저장된 프로테올리포좀을 얼음에서 해동합니다. 완충액 Q를 사용하여 소포를 5mg/mL의 지질로 희석합니다.
참고: 섹션 3에서 준비한 프로테올리포좀은 용해성 단백질을 포함하지 않으며 액체 질소에 보관하면 미리 준비할 수 있습니다. proteoGUV로 작업할 때 미세유체 장치의 막힘을 방지하기 위해 항상 작업 용액을 필터링해야 합니다. - 1mm 프로브가 있는 휴대용 프로브 초음파 발생기를 사용하여 프로테오-리포좀을 초음파 처리합니다. 70% 진폭에서 0.5초 켜 짐 및 0.5초 꺼짐 의 10주기 동안 초음파 처리합니다. 이후 proteoSUV라고 하는 소포를 30초 동안 얼음 위에 유지하고 초음파 처리 과정을 5번 반복합니다.
- 100μL 주사기(휴대용 LCP 디스펜서에 있음)에 proteo-SUV 현탁액을 채웁니다. 이전에 준비된 아가로스 겔에 0.5μL의 프로테오-SUV 방울을 증착합니다. 아가로스 층을 방해하지 않도록 주의하고 물방울이 융합되지 않도록 충분한 거리를 유지하십시오.
주의사항 휴대용 LCP 디스펜서를 사용하면 재현 가능한 방식으로 액적을 침착할 수 있지만 대체 피펫팅 시스템도 사용할 수 있습니다. 유리 모세관으로 얼룩을 잡는 것은 건조된 아가로스 겔을 방해하기 때문에 적합하지 않습니다. - 압축 공기 대신 질소 흐름을 사용하여 ~10분 안에 SUV 방울을 건조시켜 지질 산화 가능성을 줄입니다.
- 완충액 A에서 1.25x 농축 완충액 O(표 4) 1mL를 준비하고 0.2μm 셀룰로오스 아세테이트 필터를 통과시킵니다. 800 μL의 1.25x 농축 용액을 취하여 용해성 효소와 프로브를 표 4와 같은 농도로 첨가합니다. 여과된 탈이온수를 사용하여 최종 부피를 1mL로 만듭니다.
- 단백질과 글리세롤을 제외한 표 4의 모든 성분을 포함하는 100μL의 팽윤 용액을 준비합니다. 3점 보정된 어는점 삼투압계를 사용하여 팽윤 용액의 삼투압을 측정합니다.
참고: 이 용액의 삼투압을 정확하게 측정하기 위해 단백질과 글리세롤이 없는 100μL의 팽윤 용액을 준비하십시오. 단백질 용액에 존재하는 글리세롤은 삼투압에 영향을 미치지만, GUV에서 글리세롤은 막을 가로질러 빠르게 확산되어 일시적인 삼투압 차이만 유발합니다. - 겔이 들어있는 두 개의 대물렌즈와 그 사이에 1.5mm 또는 3.0mm 두께의 테프론 스페이서를 끼운 건조된 SUV를 샌드위치로 만들어 GUV 팽창 챔버를 조립합니다. 그런 다음 주사기와 바늘을 사용하여 측면의 작은 구멍을 통해 챔버의 팽창 용액을 추가합니다.
알림: 팽창 용액의 부피는 스페이서를 1.5mm에서 3.0mm까지 변경하여 조정할 수 있습니다.
- 저겔화 온도(LGT)의 0.5%(w/w)를 전자레인지에서 용액을 가열하여 탈이온수에 용해시킵니다. 아가로스가 완전히 녹았는지 확인하고 용액을 끓이지 마십시오. 더 사용할 때까지 아가로스를 50°C에서 유지하십시오.
- 수포의 부종과 GUV의 수확
- 챔버를 최소 22분 동안 30°C로 두어 소포가 부풀어 오를 수 있도록 합니다.
참고: 소포의 팽창 후에는 단백질 또는 지질이 형광 라벨링된 경우 광학 현미경(예: 탁상용 위상차 현미경 또는 광시야 형광 현미경)으로 검사할 수 있습니다. - 챔버를 단단한 표면(예: 실험실 벤치)에 두드려 부드러운 물리적 교반을 가하여 겔에서 GUV를 수확합니다. 부피의 1/3을 제거하고 생성된 기포를 사용하여 나머지 액체에 부드럽게 움직임을 유도하여 겔에서 GUV를 분리합니다.
- GUV가 팽창하는 동안 완충액 P를 준비하고 포도당 농도를 조정하여 팽창액과 삼투압을 일치시킵니다. 0.2μm 주사기 필터를 통해 버퍼를 여과합니다.
알림: 일반적으로 세척 및 기질 용액은 ± 5 mosmol/kg 이내로 유지해야 합니다. 칩을 통과하는 모든 용액은 오염 물질이 채널을 막을 수 있으므로 매우 깨끗해야 합니다. 매번 새로운 버퍼를 만들거나 준비된 버퍼를 -20 °C에서 보관하고 사용하기 전에 여과하십시오.
- 챔버를 최소 22분 동안 30°C로 두어 소포가 부풀어 오를 수 있도록 합니다.
- 현미경 실험을 위한 GUV 포획
- 부동태화 미세유체 칩을 현미경의 샘플 스테이지에 장착합니다. 가능한 결함(예: 누출, 갇힌 공기, 막힌 채널)을 확인하십시오.
알림: 필요한 경우 새 칩을 준비할 수 있도록 칩을 사용하기 전에 잘 확인할 수 있는지 확인하십시오. - 구부러진 바늘을 사용하여 튜브를 저장소의 출구에 연결하고 다른 쪽 끝을 1mL 주사기에 연결합니다. 주사기를 펌프에 장착하고 유속을 최대 10μL/분으로 설정합니다.
- 저장소에서 세척 버퍼를 제거하고(단계 4.1.1.3) 새 매체(버퍼 P)로 교체합니다. 주사기를 통해 1-10 μL/min으로 주입하여 칩을 통한 완충액의 흐름을 시작합니다. 최소 80μL의 삼투압 균형 세척 완충액(완충액 P)으로 세척합니다.
- 저장소에서 과도한 세척 버퍼를 제거하고 (프로테오)GUV를 저장소에 추가합니다. GUV가 칩을 통과할 수 있도록 유속을 0.1-1μL/min으로 조정합니다. 충분한 GUV가 칩에 갇힐 때까지 시간이 지남에 따라 칩을 모니터링합니다.
참고: 포스파티딜글리세롤(PG), 포스파티딜세린(PS) 또는 포스파티드산(PA)과 같은 하전 지질이 상대적으로 많은>20몰%) 소포 또는 포스파티딜에탄올아민(PE)과 같은 비이중층 형성 지질은 파열을 방지하기 위해 칩을 통해 더 낮은 유속으로 도입됩니다. 순수한 포스파티딜콜린(PC)으로 구성된 소포는 더 안정적인 경향이 있습니다. - 과도한 GUV 용액을 제거하고 0.1-1 μL/min의 일정한 유량을 사용하여 세척 버퍼 P를 추가하여 외부 매체를 교환하고 포획된 GUV를 최소 1시간 동안 세척하여 캡슐화되지 않은 화합물을 제거하고 형광단이 캡슐화될 때 배경 형광을 낮춥니다. 시간 경과에 따른 배경 형광을 모니터링합니다. 배경 형광이 감소하지 않으면 칩이 막혔을 수 있습니다.
- 충분한 양의 소포가 있는 트랩의 위치를 파악하고 위치를 저장합니다. 현미경에 설정(예: 레이저 강도, 게인, 파장)을 적용하고 시계열 실험을 시작합니다.
- 삼투압 균형 기질 용액(버퍼 R)을 저장소에 추가하고 0.5μL/min의 유속을 시작합니다.
- 부동태화 미세유체 칩을 현미경의 샘플 스테이지에 장착합니다. 가능한 결함(예: 누출, 갇힌 공기, 막힌 채널)을 확인하십시오.
| 버퍼 L 구성 요소 | ||
| 구성 요소 | 1.25 x 농도 | 작업 집중 |
| 버퍼 A | 62.5 mM KPi pH 7.0 | 50mM KPi pH 7.0 |
| 자당 | 125 밀리미터 | 100 밀리미터 |
| 디에이티(DTT) | 2.5 밀리미터 | 2의 mM |
| Na-ADP (나-ADP) | 12.5 밀리미터 | 10 밀리미터 |
| 마그네슘화합물 2 | 12.5 밀리미터 | 10 밀리미터 |
| L-오르니틴 | 0.625 밀리미터 | 0.5 밀리미터 |
| 캡슐화 구성 요소 | ||
| 피라닌 또는 PercevalHR | 1 mM 또는 20 μM | |
| ArcA(아르기닌 데이미나아제) | 1 마이크로미터 | |
| ArcB(오르니틴 카르바모일전이효소) | 2 μM의 | |
| ArcC1(카바메이트 키나아제) | 5 마이크로미터 | |
표 4: 버퍼 O 및 캡슐화 구성 요소. 구성 요소는 추가 순서대로 나열됩니다. 모든 성분(탈이온수에서 MgCl2 제외)은 버퍼 A에 있으며 캡슐화 성분은 첨가 순서대로 나열되어 있습니다. 모든 수용성 단백질은 완충액 E에 있습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
리포좀에서 용해된 막 단백질의 재구성은 미리 형성된 소포의 불안정화를 필요로 합니다. 소량의 Triton X-100을 추가하면 초기에 소포의 팽창으로 인한 광 산란의 증가로 인해 540nm(A540)에서 흡광도가 증가합니다(그림 4). 최대 A540 값은 리포좀이 세제로 포화되는 지점(Rsat)이며, 그 후 Triton X-100을 더 추가하면 소포가 부분적으로 용해됩니다. Rsol에서 리포좀은 완전히 용해됩니다(그림 4). 막 단백질의 재구성을 위해 일반적으로 Rsat(화살표로 표시)보다 60% 이상 불안정한 소포를 사용합니다.
재구성 된 막 단백질 ArcD는 L-아르기닌을 소포로 운반하고 L-오르니틴을 소포 밖으로 운반하는 데...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
마이크로미터 미만의 지질 소포(proteoLUV)를 포함하는 (막) 단백질의 합성과 proteoLUV를 giant-unilamellar vesicles(proteoGUV)로 전환하기 위한 프로토콜을 제시합니다. 이 프로토콜은 다른 막 단백질 13,19,30,40의 재구성 및 여기에 제시된 L-아르기닌 분해 및 글리세롤 3-인산염 합성 경로 이외의 대사 네트워크의 캡슐화에 적용할 수 있어야 합니다.
리포좀에서 막 단백질의 재구성은 일반적으로 지질막 내 단백질의 무작위 방향을 생성합니다. ArcD 및 Glpt의 경우 단백질이 양방향으로 작동하고 용질이 총 전기화학적 전위의 부호에 따라 이동하기 때문에 방향은 중요하지 않습니다. 한 방향으로 기능하는 단백질의...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 경쟁하는 재정적 이익이 없다고 선언합니다.
감사의 글
저자들은 pBAD-PercevalHR 유전자의 클로닝에 대해 Aditya Iyer에게 감사를 표하고, 단백질 생산 및 정제를 도와준 Gea Schuurman-Wolters에게 감사를 표합니다. 이 연구는 NWO 중력 프로그램인 "Building a Synthetic Cell"(BaSyC)의 자금 지원을 받았습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 아가로스 | 시그마 알드리치 | A9414-25g | |
| 아미콘 컷오프 필터 | 시그마 알드리치 | 밀리포어 원심 필터 유닛 아미콘 울트라 | |
| BioBeads | BioRad | 152-3920 | |
| CHCl3 | Macron Fine Chemicals | MFCD00000826 | |
| D(+)-Glucose | Formedium-D | ||
| (+)-Sucrose | Formedium-DDM | ||
| Glycon | D97002 -C | ||
| Diethyl Ether | Biosolve | 52805 | |
| DMSO | 시그마-알드리치 | 276855-100ml | |
| DOPC | Avanti | 850375P-1g | |
| DOPE | Avanti | 850725P-1g | |
| DOPG | Avanti | 840475P-1g | |
| DTT | Formedium | DTT005 | |
| EtOH | J.T.Baker Avantor | MFCD00003568 | |
| Extruder | Avestin Inc | LF-1 | |
| 형광계 | Jasco | 분광 형광계 FP-8300 | |
| 글리세롤 | BOOM | 51171608 | |
| 중력 흐름 기둥 | Bio-Rad | 732-1010 | |
| Hamilton 주사기 100 µ L | Hamilton | 7656-01 | |
| Hamilton 주사기 1000 µ L | Hamilton | 81320 | |
| 핸드 헬드 LCP 디스펜서 | Art Robbins Instruments | 620-411-00 | |
| 핸드 헬드 초음파 발생기 | Hielscher 초음파 기술 | UP50H | |
| HCl | BOOM | x76021889.1000 | |
| Imidazole | Roth | X998.4-250g | |
| K2HPO4 | Supelco | 1.05099.1000 | |
| KCl | BOOM | 76028270.1 | |
| KH2PO4 | Supelco | 1.04873.1000 | |
| Kimwipe | Kimtech Science | 7552 | |
| 대형 팔콘 튜브 원심분리기 | Eppendorf | Centrifuge 5810 R | |
| L-Arginine | Sigma-Aldrich | A5006-100G | |
| 광학 현미경 | Leica | DM LS2 | |
| L-Ornithine | Roth | T204.1 | |
| LSM 레이저 스캐닝 컨포칼 현미경 | Zeiss | LSM 710 ConfoCor 3 | |
| MgCl2 | Sigma-Aldrich | M2670-1KG | |
| Microfluidic chip | Homemade | PDMS 기반 | DOI : https://doi.org/10.1039/C8LC01275J |
| Na-ADP | Sigma-Aldrich | A2754-1G | |
| NaCl | Supelco | 1.06404.1000 | |
| 나노 드롭 분광계 | Isogen Life Science | ND-1000 분광 광도계 NanoDrop | |
| NaOH | Supelco | 1.06498.1000 | |
| GUV 용 바늘 | Henke-Ject | 14-14575 | 27 G x 3/4 ''0.4 x 20 mm |
| 바늘 미세 유체 | 공학 Henke-Ject | 14-15538 | 18 G x 1 1/2 ''1.2 x 40 mm |
| Ni2+ Sepharose | Cytiva | 17526802 | |
| Nigericin | Sigma-Aldrich | N7143-5MG | |
| Nutator | VWR | 83007-210 | |
| 삼투압 측정기 | Gonotec Salmenkipp | Osmomat 3000 기본 동결 점 삼투압계 | |
| 플라즈마클리너 | 플라즈마 에칭 | PE-Avenger | |
| 폴리카보네이트 필터 | Cytiva Whatman | Nuclepor 트랙-에칭 멤브레인 제품: 10417104 | 0.4 &마이크로; m |
| 폴리카보네이트 초원심분리기 튜브 | Beckman Coulter | 355647 | |
| Pyranine | Acros Organics | H1529-1G | |
| Quartz 큐벳 (검정) | Hellma Analytics | 108B-10-40 | |
| Sephadex G-75 resin | GE 헬스케어 | 17-0050-01 | |
| Sonicator | Sonics Sonics & 재료 INC | Sonics vibra cell | |
| 주사기 필터 | Sarstedt | Filtropur S 플러스 0.2 0.2 | µ m |
| 주사기 펌프 | 하버드 장치 | A-42467 | |
| 탁상용 원심분리기 | Eppendorf | 원심분리기 5418 | |
| 테플론 스페이서 | 홈메이드 | 테프론 기반 | 45 x 26 x 1.5 또는 45 x 26 x 3 또는 20 x 20 x 3 mm |
| Tris | PanReac AppliChem | A1086.1000 | |
| Triton X-100 | Sigma Aldrich | T8787-100 ml | |
| 초원심분리기 | Beckman Coulter | Optima Max-E | |
| UV 램프 | Spectroline | ENB-280C/FE | |
| UV/VIS 분광계 | Jasco | V730 분광 광도계 | |
| Valinomycin | Sigma-Aldrich | V0627-10MG | |
| 광시야 형광 현미경 | Zeiss | AxioObserver | |
| β-Casein | Sigma Aldrich | C5890-500g |
참고문헌
- Hirschi, S., Ward, T. R., Meier, W. P., Müller, D. J., Fotiadis, D. Synthetic biology: bottom-up assembly of molecular systems. Chem Rev. 122 (21), 16294-16328 (2022).
- Ivanov, I., et al. Bottom-up synthesis of artificial cells: recent highlights and future challenges. Annu Rev Chem Biomol. Eng. 12 (1), 287-308 (2021).
- Clomburg, J. M., Crumbley, A. M., Gonzalez, R. Industrial biomanufacturing: The future of chemical production. Science. 355 (6320), (2017).
- Shi, T., Han, P., You, C., Zhang, Y. -H. P. J. An in vitro synthetic biology platform for emerging industrial biomanufacturing: Bottom-up pathway design. Synth Syst Biotechnol. 3 (3), 186-195 (2018).
- Wang, A., et al. Liver-target and glucose-responsive polymersomes toward mimicking endogenous insulin secretion with improved hepatic glucose utilization. Adv Funct Mater. 30 (13), 1910168(2020).
- Kanter, G., et al. Cell-free production of scFv fusion proteins: an efficient approach for personalized lymphoma vaccines. Blood. 109 (8), 3393-3399 (2007).
- Zeltins, A. Construction and characterization of virus-like particles: a review. Mol Biotechnol. 53 (1), 92-107 (2013).
- Jain, K. K. Synthetic biology and personalized medicine. Med Princ Pract. 22 (3), 209-219 (2013).
- Schwille, P., Frohn, B. P. Hidden protein functions and what they may teach us. Trends Cell Biol. 32 (2), 102-109 (2022).
- Sachsenmeier, P. Industry 5.0-The relevance and implications of bionics and synthetic biology. Engineering. 2 (2), 225-229 (2016).
- Schmidt, D., Jiang, Q. -X., MacKinnon, R. Phospholipids and the origin of cationic gating charges in voltage sensors. Nature. 444 (7120), 775-779 (2006).
- Godoy-Hernandez, A., et al. Rapid and highly stable membrane reconstitution by LAiR enables the study of physiological integral membrane protein functions. ACS Cent Sci. 9 (3), 494-507 (2023).
- Sikkema, H. R., et al. Gating by ionic strength and safety check by cyclic-di-AMP in the ABC transporter OpuA. Sci Adv. 6 (47), 7697(2020).
- Foucaud, C., Poolman, B. Lactose transport system of Streptococcus thermophilus. Functional reconstitution of the protein and characterization of the kinetic mechanism of transport. J Biol Chem. 267 (31), 22087-22094 (1992).
- Yoneda, J. S., Sebinelli, H. G., Itri, R., Ciancaglini, P. Overview on solubilization and lipid reconstitution of Na,K-ATPase: enzyme kinetic and biophysical characterization. Biophys Rev. 12 (1), 49-64 (2020).
- Simidjiev, I., et al. Self-assembly of large, ordered lamellae from non-bilayer lipids and integral membrane proteins in vitro. Proc Natl Acad Sci. 97 (4), 1473-1476 (2000).
- Harris, N. J., Booth, P. J. Folding and stability of membrane transport proteins in vitro. Biochim Biophys Acta BBA - Biomembr. 1818 (4), 1055-1066 (2012).
- Jackson, M. L., Litman, B. J. Rhodopsin-egg phosphatidylcholine reconstitution by an octyl glucoside dilution procedure. Biochim Biophys Acta BBA - Biomembr. 812 (2), 369-376 (1985).
- Geertsma, E. R., Nik Mahmood, N. A. B., Schuurman-Wolters, G. K., Poolman, B. Membrane reconstitution of ABC transporters and assays of translocator function. Nat Protoc. 3 (2), 256-266 (2008).
- Rigaud, J. -L., Pitard, B., Levy, D. Reconstitution of membrane proteins into liposomes: application to energy-transducing membrane proteins. Biochim Biophys Acta BBA - Bioenerg. 1231 (3), 223-246 (1995).
- Szoka, F., Papahadjopoulos, D. Procedure for preparation of liposomes with large internal aqueous space and high capture by reverse-phase evaporation. Proc Natl Acad Sci. 75 (9), 4194-4198 (1978).
- Poolman, B., et al. Synthetic Organelles for Energy Conservation and Delivery of Building Blocks for Lipid Biosynthesis. , Available from: https://www.researchsquare.com/article/rs-3385355/v1 (2023).
- Lee, K. Y., et al. Photosynthetic artificial organelles sustain and control ATP-dependent reactions in a protocellular system. Nat Biotechnol. 36 (6), 530-535 (2018).
- Méléard, P., Bagatolli, L. A., Pott, T. Giant unilamellar vesicle electroformation. Methods in Enzymology. , Elsevier. 161-176 (2009).
- Garten, M., Aimon, S., Bassereau, P., Toombes, G. E. S. Reconstitution of a transmembrane protein, the voltage-gated ion channel, KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J. Vis. Exp. (95), e52281(2015).
- Doeven, M. K., et al. lateral mobility and function of membrane proteins incorporated into giant unilamellar vesicles. Biophys J. 88 (2), 1134-1142 (2005).
- Pols, T., et al. A synthetic metabolic network for physicochemical homeostasis. Nat Commun. 10 (1), 4239(2019).
- Bailoni, E., Poolman, B. ATP recycling fuels sustainable glycerol 3-phosphate formation in synthetic cells fed by dynamic dialysis. ACS Synth Biol. 11 (7), 2348-2360 (2022).
- Van Der Heide, T. On the osmotic signal and osmosensing mechanism of an ABC transport system for glycine betaine. EMBO J. 20 (24), 7022-7032 (2001).
- Van'T Klooster, J. S., et al. Membrane lipid requirements of the lysine transporter Lyp1 from Saccharomyces cerevisiae. J Mol Biol. 432 (14), 4023-4031 (2020).
- Lou, G., Anderluzzi, G., Woods, S., Roberts, C. W., Perrie, Y. A novel microfluidic-based approach to formulate size-tuneable large unilamellar cationic liposomes: Formulation, cellular uptake and biodistribution investigations. Eur J Pharm Biopharm. 143, 51-60 (2019).
- Weiss, M., et al. Sequential bottom-up assembly of mechanically stabilized synthetic cells by microfluidics. Nat Mater. 17 (1), 89-96 (2018).
- Pols, T., Singh, S., Deelman-Driessen, C., Gaastra, B. F., Poolman, B. Enzymology of the pathway for ATP production by arginine breakdown. FEBS J. 288 (1), 293-309 (2021).
- Yandrapalli, N., Robinson, T. Ultra-high capacity microfluidic trapping of giant vesicles for high-throughput membrane studies. Lab Chip. 19 (4), 626-633 (2019).
- Ganzinger, K. A., et al. Microfluidic trapping of vesicles reveals membrane-tension dependent FtsZ cytoskeletal re-organisation. , Available from: http://biorxiv.org/lookup/doi/10.1101/791459 (2019).
- Elias, M., et al. Microfluidic characterization of biomimetic membrane mechanics with an on-chip micropipette. Micro Nano Eng. 8, 100064(2020).
- Robinson, T., Kuhn, P., Eyer, K., Dittrich, P. S. Microfluidic trapping of giant unilamellar vesicles to study transport through a membrane pore. Biomicrofluidics. 7 (4), 044105(2013).
- Cooper, A., Girish, V., Subramaniam, A. B. Osmotic Pressure Enables High-Yield Assembly of Giant Vesicles in Solutions of Physiological Ionic Strengths. Langmuir. 39 (15), 5579-5590 (2023).
- Tantama, M., Martínez-François, J. R., Mongeon, R., Yellen, G. Imaging energy status in live cells with a fluorescent biosensor of the intracellular ATP-to-ADP ratio. Nat Commun. 4 (1), 2550(2013).
- Setyawati, I., et al. In vitro reconstitution of dynamically interacting integral membrane subunits of energy-coupling factor transporters. eLife. 9, e64389(2020).
- Oropeza-Guzman, E., Ríos-Ramírez, M., Ruiz-Suárez, J. C. Leveraging the coffee ring effect for a defect-free electroformation of giant unilamellar vesicles. Langmuir. 35 (50), 16528-16535 (2019).
- Estes, D. J., Mayer, M. Electroformation of giant liposomes from spin-coated films of lipids. Colloids Surf B Biointerfaces. 42 (2), 115-123 (2005).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
