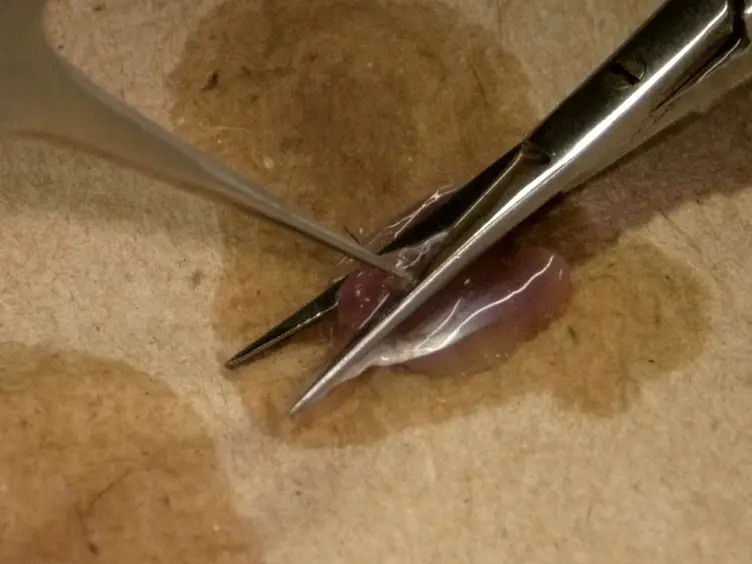
Aqui, apresentamos uma modificação de um método relatado anteriormente que permite o isolamento de mitocôndrias purificadas e de alta qualidade de quantidades menores de músculo esquelético de camundongo. Este procedimento resulta em mitocôndrias altamente acopladas que respiram com alta função durante ensaios respiratórios baseados em microplacas.
Artigo de método
Isolamento de mitocôndrias de quantidades mínimas de Rato Músculo Esquelético para medições High Throughput Microplate respiratórias
Neste artigo
Resumo
Resumo
Disfuncionais mitocôndrias do músculo esquelético desempenha um papel no metabolismo alterado observado com o envelhecimento, obesidade e diabetes tipo II. Ensaios respirométricos mitocondriais isoladas a partir de preparações mitocondriais permitir a avaliação da função mitocondrial, bem como a determinação do mecanismo (s) de acção de drogas e proteínas que modulam o metabolismo. Procedimentos de isolamento atuais requerem muitas vezes grandes quantidades de tecido para produzir mitocôndrias de alta qualidade necessários para ensaios respirométricos. Os métodos aqui apresentados descrevem como de alta qualidade mitocôndrias purificadas (~ 450 mg) pode ser isolado a partir de quantidades mínimas (~ 75-100 mg) de rato músculo esquelético para utilização em medições respiratórias alto rendimento. Nós determinamos que nosso método de isolamento produz 92,5 ± 2,0% mitocôndrias intacto medindo atividade da citrato sintase espectrofotometria. Além disso, a análise de Western blot em mitocôndrias isoladas resultou na expressão fraca da cytosoproteína lic, GAPDH, e a expressão robusta da proteína mitocondrial, COXIV. A ausência de uma banda proeminente GAPDH nas mitocôndrias isoladas é indicativo de pouca contaminação a partir de fontes não-mitocondriais durante o procedimento de isolamento. Mais importante ainda, a medição da taxa de consumo de O2 com a tecnologia de micro-placa de base e a determinação do índice de controlo respiratório (RCR) para ensaios respirométricos acoplados mostra altamente acopladas (RCR;> 6 para todos os ensaios) e mitocôndrias funcionais. Em conclusão, a adição de um passo de picagem separado e reduzindo significativamente accionada por motor de velocidade de homogeneização de um método previamente relatado que permitiu o isolamento de alta qualidade e de mitocôndrias purificadas a partir de pequenas quantidades de rato músculo esquelético que resulta em mitocôndrias altamente acopladas que respiram com elevada função durante microplacas ensaios respirometirc.
Introdução
A principal função das mitocôndrias é produzir ATP a partir da fosforilação oxidativa. No entanto, as mitocôndrias têm muitas outras funções celulares importantes, incluindo, mas não se limitando a: a produção e desintoxicação de espécies reativas de oxigênio, a regulação do cálcio citoplasmático e mitocondrial, o tráfego de organelas, a homeostase iônica e o envolvimento na apoptose1,2. Portanto, não é surpreendente que as mitocôndrias disfuncionais desempenhem um papel em muitas patologias de doenças, como envelhecimento, doenças neurodegenerativas, doenças cardiovasculares, câncer, obesidade e diabetes3,4. É importante ressaltar que as mitocôndrias do músculo esquelético estão especificamente envolvidas em muitas dessas patologias3-5.
Os ensaios de respiração mitocondrial usando mitocôndrias isoladas permitem a avaliação da cadeia de transporte de elétrons e da função de fosforilação oxidativa, e a determinação do(s) mecanismo(s) de ação de drogas e proteínas que modulam o metabolismo. Existem procedimentos de isolamento mitocondrial para vários tipos de tecidos e células para uma variedade de espécies6,7. No entanto, esses procedimentos geralmente requerem grandes quantidades de tecido/células para um rendimento mitocondrial de alta qualidade necessário para ensaios respirométricos clássicos.
Os ensaios respiratórios baseados em microplacas permitem medições de alto rendimento usando quantidades mínimas de mitocôndrias isoladas, geralmente apenas alguns μg por poço8. Portanto, apresentamos uma modificação dos métodos publicados anteriormente7 para permitir que mitocôndrias de alta qualidade sejam isoladas de quantidades menores de músculo esquelético de camundongo para uso em ensaios respiratórios baseados em microplacas. Além disso, são fornecidos métodos para estabelecer a qualidade da preparação do isolamento mitocondrial e a integridade das membranas mitocondriais. Dado que as mitocôndrias do músculo esquelético estão envolvidas em muitas condições patológicas, a medição do consumo deO2 em estudos mecanicistas está se tornando mais prevalente na pesquisa biomédica9,10.
Protocolo
Os estudos em animais foram realizados sob um protocolo aprovado pelo Institutional Animal Care e usar Comité na Virginia Polytechnic Institute e State University.
1. Instalação (Time: ~ 45 min)
- Lojas de congelados descongelamento de tripsina a 0,25%, tampão de isolamento para mitocôndrias (IBM) 1 e IBM2 em um banho de água a 37 ° C.
- Enxágüe copos e instrumentos de dissecação em etanol a 70%, seguido por água de alta pureza.
- Preparar a solução de tripsina a 0,05% a partir de 0,25% estoque de tripsina diluindo 1 parte de tripsina em 4 partes IBM1.
- Misturar protease e fosfatase cocktail inibidor com tampão de lise celular (1: 100 rácio) num tubo de microcentrífuga de 1,5 ml com tampa de rosca.
- Alíquotas de 5 ml (5 ml / rato) de tripsina a 0,05% para um tubo de plástico de 15 ml.
- Ajuste motorizado homogeneizador de tecidos a 80 RPM.
2. Isolamento de mitocôndrias Músculo Esquelético (Tempo: ~ 90 min)
- Euthanize um rato por CO 2 inalação, seguido por deslocação cervical.
- Remover músculo vermelho do músculo gastrocnémio e quadríceps, que inclui o sóleo (~ 75-100 mg no total) tal como descrito nas etapas a seguir:
- Descasque a pele para o mouse.
- Remova a almofada de gordura sobre o ponto de origem do quadríceps. Corte o tendão do quadríceps que está ligado à patela com uma tesoura de ponta fina.
Nota: O quadríceps é identificado por sua posição anatômica na porção anterior do fêmur proximal. - Lentamente cortar o aponeurosis entre o osso e os quadríceps, evitando a artéria femoral, para libertar os quadríceps do osso. Corte o tendão com uma tesoura de ponta fina no ponto de origem no fêmur para liberar o músculo quadríceps e coloque o músculo quadríceps em refrigerados PBS.
- Remover o tecido adiposo visível sobre o quadríceps com uma tesoura. Virar o quadríceps de forma que a parte do músculo que se recobre o fémur é virado up. Abra o músculo quadríceps com uma pinça em um movimento de ventilação. Retire as duas porções musculares vermelhas visíveis de cada lobo com uma tesoura de ponta fina e coloque em um copo contendo 5 ml de refrigerados IBM1.
Nota: músculo quadríceps aparecem como dois lobos com uma tira de músculo vermelho localizado perto da borda lateral de cada lóbulo. - Corte a pele que recobre o tendão de Aquiles com tesouras com ponta fina e descascar a pele na direção do mouse. Cortar o tendão de Aquiles exposta e descasque o músculo em direcção ao corpo do rato.
- Corte o tendão no côndilos lateral e medial do fêmur com uma tesoura de ponta fina para libertar o gastrocnêmio e coloque o gastrocnêmio anexado aos seus tendões em refrigerados PBS.
- Virar o gastrocnêmio sobre e descolar o músculo sóleo e coloque no copo contendo 5 ml de refrigerados IBM1. Fan abrir o gastrocnêmio. Remova os três porções visuais vermelhas musculares (duas tiras vermelhas lateral e um medial superficial) com tesoura de ponta finas e transferi-los para o copo contendo 5 ml de refrigerados IBM1.
- Remover outro ~ 75-100 mg de vermelho de músculo a outra perna do rato (conforme descrito no passo 2.2) e colocar num tubo de microcentrífuga de 1,5 ml com protease e fosfatase cocktail inibidor e tampão de lise celular (50 mM Tris-HCl, 1 mM de EDTA, 150 mM de NaCl, 1% de dodecil sulfato de sódio, 0,5% de desoxicolato de sódio, 1% de polioxietileno (9) nonilfeniléter, ramificada. Imediatamente piscar-congelar esta segunda amostra em azoto líquido para posterior utilização em transferência Western (ver passo 6.1).
- Colocar uma superfície de plástico pré-gelada, plana sobre gelo em um balde grande. Pour uma gota de IBM1 sobre a superfície de plástico e utilizar uma pinça para colocar todo o músculo vermelho segmentado (passo 2.2.4 e 2.2.7) em IBM1 gota. Picar o tecido muscular durante 2 minutos usando 3 individuais lâminas de barbear borda, alterando lâminas de barbear a cada 40 seg.
- Transferir o tecido moído para um novo recipiente com 5 ml de IBM1 fresco, mantendo a superfície de plástico sobre o the proveta e raspando o músculo para a proveta com uma lâmina de barbear. Tome esta solução e drená-lo através de um filtro de células 100 mm colocados em um tubo de 50 ml.
- Seque o tecido com um limpador tarefa delicada e, em seguida, transferi-la para 5 ml de solução de tripsina a 0,05%. Use pinças para remover o tecido a partir da tarefa do limpador.
- Incubar o tecido muscular em gelo durante 30 min em solução de tripsina a 0,05%.
- Rodar as tubo de 15 ml contendo mistura de tripsina / músculo a 200 xg durante 3 min a 4 ° C.
- Despeje o sobrenadante tripsina em um recipiente de resíduos e ressuspender o sedimento com 3 ml de gelo frio IBM1. Transferir o tecido para um tubo de 45 ml homogeneizador de vidro. Lavar as 15 ml tubo cônico com mais 1,5 ml IBM1 para recolher qualquer amostra restante e adicione ao tubo de homogeneizador de vidro.
- Colocar o tubo homogeneizador de vidro para um copo ou recipiente de plástico a meio caminho cheio de gelo de modo que o homogeneizador de vidro move-se minimamente no interior da taça.
- Homogeneizar a mistura tecido / IMB1 com o pilão de PTFE ligados a um homogeneizador de tecido accionada por motor com 10 passagens a 80 rpm. Segure a parte inferior de cada passagem para ~ 2 seg.
- Transferir o homogeneizado de tecido para um novo tubo de 15 mL cónico e enxaguar o tubo homogeneizador de vidro com 6,5 ml de IBM1. Verter a IBM1 para dentro do tubo cónico de 15 ml contendo homogeneizado de tecido.
- Girar o tubo de 15 ml a 700 g durante 10 min a 4 ° C. Delicadamente despeje o sobrenadante para um tubo de centrífuga de alta resistência vidro e descartar o pellet.
- Girar o sobrenadante do passo anterior a 8000 xg durante 10 min a 4 ° C.
- Remover o sobrenadante e re-IBM1 suspender o sedimento, adicionando-se lentamente 500 ul de IBM2. Cortar a extremidade de uma ponta de pipeta e homogeneizar suavemente o sedimento em IBM2 com mistura e agitação movimentos. Adicionar mais 4,5 ml de IBM2 à mistura após a pelete é totalmente suspenso.
Nota: Evite trituração excessiva ao quebrar pedaços maiores de pelotas como tHis pode danificar as membranas mitocondriais. - Girar o homogenato / tecido IBM2 a 8000 xg durante 10 min a 4 ° C.
Nota: Esta etapa pode ser repetida num tubo de centrífuga limpo de alta resistência, para a quantificação mais precisa da proteína de mitocôndrias isoladas no Passo 4, uma vez de BSA residual pode contribuir para o conteúdo de proteína total. - Remover o sobrenadante e suavemente, mas completamente re-suspender o sedimento, adicionando dois incrementos de 25 ul de IBM2 com uma ponta de pipeta com a ponta cortada. Agitar suavemente o sedimento e misturar após cada adição de 25 ul de IBM2. Coloque este estoque mitocondrial no gelo.
3. A homogeneização da Whole Tissue Lysate (Tempo: ~ 45 min; pode ser feito durante Passo 7)
- Remover o músculo do que foi colocada em azoto líquido a partir do passo 2.3 e incubar à temperatura ambiente até estarem completamente descongelados.
- Picar o tecido para ~ 30 segundos em gelo com uma tesoura de ponta fina.
- Adicione duas colheres de 100 ul de ZircoÓxido nio Beads para o tubo de microcentrífuga de 1,5 ml com tampa de rosca a partir do passo 3.2 que contém o tecido picada. Homogeneizar o tecido em um homogeneizador de tecidos moinho de esferas usando dois a três ciclos de 5 min a uma velocidade de 4-6 configuração (ajuste médio).
- Girar-se a mistura a partir do passo 3.3 a 12.000 xg durante 10 min a 4 ° C. Remover o sobrenadante utilizando uma ponta de pipeta de 1.000 ul, após a centrifugação e transferência para um tubo de microcentrífuga de 1,5 ml. Desprezar o pelete e colocar o sobrenadante em gelo.
4. Determinação da proteína (Tempo: ~ 30 min)
- Determinar a concentração de proteína de lisado de todo o tecido (passo 3.4) e da mitocondrial (passo 2.17) utilizando o kit de ensaio de proteínas BCA de acordo com as especificações do fabricante.
5. As mitocôndrias Membrane Integridade; Citrato sintase (CS) Atividade (Tempo: ~ 15 min)
- Faça dois separados 1: 20 diluições do estoque mitocondrial em água de alta pureza. Adicionar0,1% de Triton X-100 para uma amostra e sonicate-lo em um nível baixo (765 Watts, amplitude de 2). Deixe a outra diluição no gelo. Recolocar a amostra de gelo após sonicação.
- Realizar um ensaio de citrato sintase tanto com a não-sonicada e sonicada diluições mitocondriais utilizando um ensaio espectrofotométrico conforme anteriormente descrito 11,12.
- Determinar a percentagem de membranas mitocôndrias intactas, utilizando as seguintes equações:
(CS atividade não-sonicado ÷ sonicado atividade CS) * 100
100- N- (percentagem obtida a partir de cima)
6. As mitocôndrias Qualidade de isolamento; Western Blotting (Horário: De acordo com Lab Protocol)
- Realizar Western blotting em todo o lisado de tecido e mitocôndrias isoladas como anteriormente descrito 12.
Nota: O uso de anticorpos primários para GAPDH (1: 1000 de diluição em 5% de BSA / TBS-T) e COXIV (1: 1000 de diluição em 5% de gordura não-leite / TBS-T), seguido por anti-cabra, e anticorpos secundários de coelho, respectivamente (1: 10.000).
7. respirométrico Ensaio Run (Time: ~ 90 min)
- Realizar ensaios respirométricos desejados utilizando baseado O 2 tecnologia de medição do consumo de microplaca, como descrito anteriormente (ver artigo do companheiro e Rogers et al 8).
- Determinar a relação de controle respiratório (RCR) dividindo Estado 3 por Estado 4o (RCR) ou dividindo 3U Estado por Estado 4o. Use o (média) ponto médio, ou o mais elevado (estado 3) e taxas mais baixas (4o Estado) a partir de vestígios ponto-a-ponto ao determinar RCR.
Resultados
Atividade da citrato sintase serve como uma medida para a integridade da membrana, uma vez sintase de citrato é localizado na membrana mitocondrial interna, e, portanto, não devem estar presentes nas suspensões de mitocôndrias com membranas intactas. A Figura 1 representa a actividade da sintase de citrato em amostras não sonicada mitocondriais em comparação com sonicada amostras do mesmo isolamento. Sonicando os resultados mitocôndria em um aumento estatisticamente significativo na atividade da citrato sintase (P <0,01). Importante, 92,5 ± 2,0% das mitocôndrias foram intacta após o isolamento.
A Figura 2 representa a expressão de GAPDH e COXIV em mitocôndrias isoladas e todo o lisado de tecido do músculo esquelético. GAPDH é uma proteína localizada no citosol, mas também pode ser encontrado no núcleo após translocação, enquanto COXIV é uma proteína localizada na membrana mitocondrial interna. A expressão de GAPDH e COXIV são evidentes em todo o tissue lisado. Em mitocôndrias isoladas, expressão de COXIV é observada, enquanto apenas bandas fracas de GAPDH são evidentes. Estes resultados indicam boas isolamentos mitocondriais, com pouca contaminação a partir de componentes não-mitocondriais durante o procedimento de isolamento.
A Figura 3 é um traçado representativo da taxa de consumo de O 2 (OCR) em função do tempo para um ensaio de acoplamento (10 mM de piruvato / 5 mM malato) realizada a partir de mitocôndrias isoladas usando este protocolo e realizadas com base tecnologia de microplacas consumo de O 2. Cada painel representa o consumo de O2 em diferentes estados mitocondriais, como descrito por acaso e Williams 13. O primeiro painel representa basal consumo de O 2, ou Estado 2. O segundo painel, após a injecção de ADP, representa máxima acoplado respiração, ou Estado 3. O terceiro painel, após a injecção de oligomicina A (um inibidor de Complexo V), represents respiração devido ao vazamento de prótons, ou Estado 4o. O quarto painel, após a injeção de FCCP, representa máxima respiração desacoplado, ou 3U Estado. Finalmente, o quinto painel, após a injecção de antimicina A, representa a inibição da respiração oxidativo. A relação de controle respiratório (RCR), uma medida da função mitocondrial 1, foi calculada dividindo Estado 3 por Estado 4o. Tabela 4 relatórios os valores médios RCR para ensaios de acoplamento substrato alternativos que podem ser realizadas a partir do rendimento mitocôndrias deste protocolo. É importante ressaltar que o consumo de O 2 rastreamento e os valores RCR altos representam altamente funcional e mitocôndrias acopladas. RCR valores aqui relatados são maiores do que ou semelhante relatada anteriormente utilizando protocolos de isolamento semelhantes no músculo esquelético de murino 7,14,15, acentuando assim, a elevada qualidade das mitocôndrias isoladas durante este procedimento.

Figura 1: citrato sintase Atividade. Actividade da enzima sintase de citrato, como determinado por espectrofotometria na preps não sonicadas e sonicadas mitocôndria. Os valores são expressos como média ± SEM. ** p <0,01. Os dados representam N = 3 emparelhado réplicas biológicas e expressa em relação ao mg de proteína. 
Figura 2:. Citosólico e expressão da proteína mitocondrial em mitocôndrias isoladas e ligado de tecido inteiro Ambas as mitocôndrias isoladas e lisados de tecido inteiras foram imunotransferidas com COXIV e anticorpos GAPDH. A proteína mitocondrial, COXIV, foi evidente em ambas as amostras, no entanto GAPDH foi apenas fracamente evidente nas mitocôndrias isoladas. A ausência de uma banda de GAPDH de destaque no the mitocôndrias isoladas é indicativo de pouca contaminação a partir de fontes não-mitocondriais durante o procedimento de isolamento.

Figura 3:. Rastreio representativas de ensaio de acoplamento com mitocôndrias isoladas de rato músculo esquelético 10 mM de piruvato / 5 mM malato acoplado mitocondriais traçados ensaio respiração conforme determinado por multi-poços de medição de consumo de O 2. Os valores são expressos como média ± DP. Proteína mitocondrial carregado por poço foi de 2,5 ug. OCR = O 2 Taxa de Consumo; ADP = difosfato de adenosina; Oligo = oligomicina A; FCCP = carbonílico cyanide- 4 - (trifluorometoxi) fenil-hidrazona; Anti-A = Antimicina A.
| Reagente | Da Concentração | MW | O volume final | Mass Adicionado |
| (H) | (g / mol) | (ml) | (g) | |
| Tris / HCl, pH 7,4 | 2 | 157,56 | 250 | 78,8 |
| Tris / HCl, pH 7,4 | 1 | 157,56 | 250 | 39.39 |
| KCL | 1 | 74.55 | 500 | 37,28 |
| Tris Base de Dados | 1 | 121,14 | 100 | 12.11 |
| EDTA, pH 8 | 0,5 | 416,2 | 100 ml (1 M em Tris base) | 20.81 |
| EGTA, pH 7,2 | 0,1 | 380,35 | 100 (em 1 M de Tris base) | 3,801 |
Tabela 1: Preparação de soluções de estoque.
| Reagente | Da Concentração | Mass Adicionado | Molarity final / Percent |
| (H) | (g ou ml) | ||
| Sacarose | - | 11,47 g | 67 mM |
| Tris / HCl, pH 7,4 | 2 | 12,5 ml | 50 mM |
| KCL | 1 | 25 ml | 50 mM |
| EDTA / Base Tris, pH 8 | 0,5 | 10 ml | 10 mM |
| Essencialmente FA gratuito BSA | - | 1 g | 0.20% |
| pH 7,4, 500 ml: alíquota de 50 ml e congelamento | |||
Tabela 2: Preparação de tampão de isolamento para as mitocôndria 1 (IBM1).
| Reagente | Da Concentração | Mass Adicionado | Molarity final / Percent |
| (H) | (g ou ml) | ||
| D-manitol | - | 10,9 g | 200 mM |
| Sacarose | - | 7,188 g | 70 mM |
| EGTA / Tris Base de Dados | 0,1 | 15 ml | 5 mM |
| Tris-HCl, pH 7,4 | 1 | 3 ml | 10 mM |
| pH 7,4, 300 ml: Alíquota de 15 ml e congelamento | |||
Tabela 3: Preparação de tampão de isolamento para as mitocôndria 2 (IBM2).
| Substrato Médio | Concentração final | RCR |
| Pyruvate / Malate | 10 mM / 5 mM | 16,2 ± 4,6 |
| Succinate / Rotenone | 10 mm / 2 uM | 10,6 ± 3,8 |
| Palmitoyl L-Carnitina / Malate | 40 jiM / 1 mM de Malato | 6,7 ± 0,6 |
| Glutamato / malato | 10 mM / 10 mM | 8,6 ± 0,4 |
Tabela 4: Índices de controle respiratório para mitocondrial respiração Ensaios rácios de controle respiratório acopladas conforme determinado pela primeira medição O 2 as taxas de consumo com ensaios respirométricos em microplacas, seguido pela divisão máxima acoplado a respiração (ADP Stimulated Estado 3) pela respiração devido ao vazamento de prótons (oligomicina. A 4o Estado resposta). Os valores são expressos como meSE ±. Proteína mitocondrial carregado por poço foi de 2,5 ug para o piruvato / malato e succinato / ensaios de rotenona, e 3,5 ug de proteína mitocondrial por poço para o palmitoil-L-carnitina / malato e glutamato / malato ensaios.
Discussão
Os métodos aqui apresentados proporcionam uma descrição detalhada de um procedimento de isolamento de quantidades mínimas mitocondrial (~ 75-100 mg) de rato músculo esquelético. Este procedimento de isolamento é capaz de produzir alto funcionamento, as mitocôndrias puro (~ 450 mg) como evidenciado pela O2 taxas de consumo, valores RCR, atividade da citrato sintase máxima e expressão de proteína de immunoblotting. Importante, as mitocôndrias isoladas a partir deste processo pode ser usado para múltiplos ensaios respirometirc com base O2 tecnologia que permite que o consumo de microplacas para alto rendimento.
O isolamento de mitocôndrias de músculo esquelético, muitas vezes requer métodos severos para libertar mitocôndrias de tecido conjuntivo circundante e proteínas estruturais 7,16. Consequentemente, membranas mitocondriais podem ficar interrompidas, prejudicando assim a actividade (e assim a precisão) de mitocondrial consumo de O 2 durante respirome subsequenteensaios tricas. Com a inclusão de um passo adicional de tecido picagem usando lâminas de barbear após a excisão de tecido para um protocolo previamente descrito 7, uma velocidade do rotor do motor significativamente reduzida para homogeneização foi conduzido possível (80 rpm vs 1.600 rpm). Estas técnicas de homogeneização e ressuspensão mais suaves conduz a uma elevada percentagem de mitocôndrias com membranas intactas (92,5 ± 2,0%), tal como avaliado a partir de actividade de sintase de citrato de acordo com o procedimento de isolamento. Nossos resultados são consistentes com Asmann et al. 17, que relatam que entre 90-95% intactas preparações mitocondriais após isolamento de músculo esquelético humano. É importante notar que a medição da actividade de sintase de citrato é mais adequado para a medição da integridade física das membranas mitocondriais e não deve ser utilizado para avaliar a integridade funcional das mitocôndrias isoladas. Por outro lado, ensaios de consumo de O 2 e a determinação de RCR destes ensaios devem ser usadas para MEAse a função de mitocôndrias isoladas 1. Além disso, RCR também pode ser usado como um indicador de mitocôndrias acopladas. Portanto, o OCR e estados mitocondriais dentro de uma gama típica do piruvato / malato de ensaio 8, e os valores de RCR elevados obtidos a partir de uma variedade de ensaios respirométricos indica que as mitocôndrias derivados deste protocolo estão fortemente acoplados e altamente funcional.
Isolamento de mitocôndrias intactas e puras tem implicações importantes para os ensaios respirometic. A contaminação de proteínas não-mitocondriais na preparação mitocondrial final pode resultar em carregar quantidades desiguais de proteína mitocondrial a cada poço durante as medições de consumo de O 2, diminuindo assim a precisão de uma comparação entre as experiências realizadas utilizando diferentes preparações de mitocôndrias. Além disso, a contaminação da preparação mitocondrial com outros organelos que respiram (por exemplo, peroxissomas) cAn diminuir ainda mais a precisão das medições de consumo de O 2. A presença da proteína mitocondrial interna, COXIV, e a ausência de uma banda proeminente da citosólica (e potencialmente nuclear) proteína, GAPDH, em nossa preparação isolada mitocondrial seguinte imunotransferência é indicativo de pouca contaminação a partir de fontes não-mitocondriais durante o procedimento de isolamento .
É importante notar que, embora o isolamento de uma preparação purificada mitocondrial é importante no que diz respeito ao acima mencionado, a manutenção da integridade mitocondrial é de extrema importância nos ensaios de respiração. A membrana mitocondrial externa pode ser facilmente danificadas durante o procedimento de isolamento, que conduz à fuga de citocromo C no tampão de isolamento e, assim, tornar-se limitante da velocidade durante o consumo de O2 e da síntese de ATP 18. Portanto, a integridade de mitocôndrias isoladas pode ser avaliada através da quantificação citocromoa expressão da proteína CE no sobrenadante da preparação mitocondrial (passo 2.15, antes de ressuspensão) e em mitocôndrias isoladas, com transferência de Western. O citocromo c não devem estar presentes na preparação sobrenadante mitocondrial se as membranas mitocondriais são intacto seguindo os procedimentos de isolamento.
Todas as etapas deste protocolo são importantes, no entanto, existem três passos essenciais para esse protocolo. Em primeiro lugar, a trituração do músculo esquelético vermelho com três lâminas de barbear diferentes (passo 2.4) é fundamental, porque este passo permite velocidades mais lentas do rotor durante a etapa de homogeneização (passo 2.11). Em segundo lugar, o desempenho de muitos passos no gelo ou em tampões refrigerados é crítica para manter a mitocôndria em um estado de repouso, antes de os ensaios respirométricos em microplacas. Finalmente, a ressuspensão suave do sedimento mitocôndrias em IBM2 é de extrema importância. A mistura suave mantém a integridade mitocondrial, que é crucial para resp precisasensaios irometic.
Algumas limitações desta técnica merecem destaque. Em primeiro lugar, o equipamento necessário (por exemplo, ultracentrífuga, homogeneizador accionado por motor, etc.) para executar o procedimento de isolamento pode ser caro. Além disso, são necessários vários métodos de controlo de qualidade para assegurar mitocôndrias limpa e intacta. No entanto, uma vez que o investigador é proficiente no procedimento de isolamento, mitocôndrias de alta qualidade são gerados que podem ser utilizados em uma grande variedade de medidas, incluindo, mas não se limitando a: manchas de Western, ensaios enzimáticos, RT-PCR, PCR, H 2 O 2 ensaios e medições respiratórias alta taxa de transferência de microplacas. É importante notar que este processo de isolamento foi optimizado e modificado para pequenas quantidades de rato músculo esquelético e cuidado deve ser tomado ao tentar aplicar técnicas de isolamento a partir de um determinado tecido a partir da mesma espécie (e mesmo para o mesmo tecido a partir de espécies diferentes ) para outros tecidos / especies. Para melhores resultados, buscando a literatura vai ser a melhor opção quando se tenta encontrar o melhor método de isolamento para o tecido / espécies destinadas.
Divulgações
George Rogers é um funcionário da Seahorse Bioscience que produz o instrumento para o qual este protocolo foi modificado.
Agradecimentos
O Fralin Life Science Research Institute e o Metabolic Phenotyping Core da Virginia Tech apoiaram este trabalho.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Essencialmente gorduroso | Sigma Aldrich | A6003 | N / A |
| livre de ácido - BSA | |||
| Tris / HCl | Promega | H5123 | N / A |
| KCL | Sigma Aldrich | P9541 | N / A |
| Tris Base | Promega | H5135 | N / A |
| EDTA | Sigma | Aldrich E6511 | N / A |
| EGTA | Sigma Aldrich | E4378 | N/A |
| Sacarose | Sigma Aldrich | S7903 | N/A |
| D-Manitol | Sigma Aldrich | 63559 | N/A |
| Tripsina-EDTA (0,25%), vermelho fenol | Thermo Scientific | 25200-056 | N/A |
| Cloreto de Sódio Cristais Brancos ou Pó Cristalino ≥ 99.0 % | Fisher Scientific | BP3581 | N/A |
| Dodecil Sulfato de Sódio | Sigma Aldrich | L3771 | N/A |
| Desoxicolato de sódio | Sigma Aldrich | D6750 | N/A |
| Éter nonilfenílico de polioxietileno (12), ramificado | Sigma Aldrich | 238651 | N/A |
| de borda única | Fisher Scientific | 12-640 | N/A |
| Falcon- 100 uM Filtros de células de nylon | Fisher Scientific | 352360 | N/A |
| Halt Protease & Coquetel de inibidor de fosfatse | Thermo Scientific | 1861284 | N / A |
| Tubos de microcentrífuga de 1,5 ml com tampa de rosca | Thermo Scientific | 3474 | N / A |
| Grânulos de óxido de zircônio | Fisher Scientific | C9012112 | N / A |
| anticorpo GAPDH (1D4) | Santa Cruz Biotechnology | sc-59540 | N/A |
| Anti- COXIV anticorpo | Cell Signaling | 4844s | Qualquer proteína mitocondrial da membrana interna será suficiente |
| Burro affinipure conjugado com Peroxidase, Anti Rabbit IgG (H+L) | Jackson ImmunoResearh | 711-035-152 | N/A |
| Peroxidase conjugada affinipure Goat, Anti Mouse IgG (H+L) | Jackson ImmunoResearh | 115-001-003 | N/A |
| Triton-X100 | Sigma Aldrich | X100 | N/A |
| Pierce BCA Protein Assay Kit | Thermo Scientific | 23225 | N/A |
| Ácido Pirúvico, 98% | Sigma Aldrich | 107360 | Loja em 4 ° C,pH até 7.4 com KOH antes de usar em ensaio respirométrico |
| Ácido Succínico | Sigma Aldrich | S9512 | Armazene à temperatura ambiente, pH até 7.4 com KOH antes de usar em ensaio respirométrico |
| L(-) Ácido Málico, BioXtra, ≥ 95% | Sigma Aldrich | M6413 | Armazene em temperatura ambiente, a 7,4 com KOH antes de usar em ensaio respirométrico |
| Ácido L-glutâmico | Sigma Aldrich | G1251 | Armazene em temperatura ambiente, a 7,4 com KOH antes de usar em ensaio respirométrico, a 7,4 com KOH antes de usar em ensaio |
| Cloreto de L-carnitina Palmitoil | Sigma Aldrich | P1645 | Armazene a -20 ° C |
| Oligomicina A, ≥ 95% (HPLC) | Sigma Aldrich | 75351 | Loja a -20 ° C |
| Cianeto de carbonila 4-(trifluorometoxi) | Sigma Aldrich | C2920 | Loja em 2-8 ° C |
| fenilhidrazona | |||
| ≥ 98% (TLC), pó [FCCP] | |||
| Antimicina A de streptomyces sp. | Loja Sigma Aldrich | A8674 | a -20 ° C |
| Adenosina 5′-difosfato monopotássio sal desidratado [ADP] | Sigma Aldrich | A5285 | Armazenar a -20 &graus; C, a 7,4 com KOH antes do uso no ensaio |
| Rotenona | Sigma Aldrich | R8875 | Armazenar em temperatura ambiente |
Referências
- Brand, M., Nicholls, D. Assessing mitochondrial dysfunction in cells. Biochem. J. 435, 297-312 (2011).
- Nicholls, D. G., Ferguson, S. Bioenergetics. , Academic Press. (2013).
- Nunnari, J., Suomalainen, A. Mitochondria: in sickness and in health. Cell. 148, 1145-1159 (2012).
- Lauri, A., Pompilio, G., Capogrossi, M. C. The mitochondrial genome in aging and senescence. Ageing Res. Rev. 18, 1-15 (2014).
- Dube, J. J., et al. Effects of acute lipid overload on skeletal muscle insulin resistance, metabolic flexibility, and mitochondrial performance. Am. J. Physiol. Endocrinol. Metab. 12, 1117-1124 (2014).
- Fernandez-Vizarra, E., Lopez-Perez, M. J., Enriquez, J. A. Isolation of biogenetically competent mitochondria from mammalian tissues and cultured cells. Methods (San Diego, Calif). 26, 292-297 (2002).
- Frezza, C., Cipolat, S., Scorrano, L. Organelle isolation: functional mitochondria from mouse liver, muscle and cultured fibroblasts. Nat. Protoc. 2, 287-295 (2007).
- Rogers, G. W., et al. High throughput microplate respiratory measurements using minimal quantities of isolated mitochondria. PloS one. 6, e21746(2011).
- Guarino, R. D., et al. Method for determining oxygen consumption rates of static cultures from microplate measurements of pericellular dissolved oxygen concentration. Biotechnol. and Bioeng. 86, 775-787 (2004).
- Will, Y., Hynes, J., Ogurtsov, V. I., Papkovsky, D. B. Analysis of mitochondrial function using phosphorescent oxygen-sensitive probes. Nat. Protoc. 1, 2563-2572 (2007).
- Hulver, M. W., et al. Elevated stearoyl-CoA desaturase-1 expression in skeletal muscle contributes to abnormal fatty acid partitioning in obese humans. Cell Metab. 2, 251-261 (2005).
- Frisard, M. I., et al. Toll-like receptor 4 modulates skeletal muscle substrate metabolism. Am. J. Physiol. Endocrinol. Metab. 298, e988-e998 (2010).
- Chance, B., Williams, G. R. The respiratory chain and oxidative phosphorylation. Adv. Enzymol. Relat. Subjects of Biochem. 17, 65-134 (1956).
- Garcia-Cazarin, M. L., Snider, N. N., Andrade, F. H. Mitochondrial isolation from skeletal muscle. JoVE. , (2011).
- Gross, V. S., et al. Isolation of functional mitochondria from rat kidney and skeletal muscle without manual homogenization. Anal. Biochem. 418, 213-223 (2011).
- Krieger, D. A., Tate, C. A., McMillin-Wood, J., Booth, F. W. Populations of rat skeletal muscle mitochondria after exercise and immobilization. J. Appl. Physiol.: Respir., Envir. and Ex. Physiol. 48, 23-28 (1980).
- Asmann, Y. W., et al. Skeletal muscle mitochondrial functions, mitochondrial DNA copy numbers, and gene transcript profiles in type 2 diabetic and nondiabetic subjects at equal levels of low or high insulin and euglycemia. Diabetes. 55, 3309-3319 (2006).
- Lanza, I. R., Nair, K. S. Functional assessment of isolated mitochondria in vitro. Methods Enzymol. 457, 349-372 (2009).
Reimpressões e permissões