Qui, abbiamo dettagliato come sincronizzare Drosophila ad un giorno circadiano. Questo è il primo e più importante passo necessario per studiare i ritmi biologici e la cronobiologia.
Articolo metodologico
Ingresso circadiano della Drosophila Melanogaster
In questo articolo
Sommario
Abstract
Quasi universali tra gli organismi, i ritmi circadiani coordinano l'attività biologica all'orbita terrestre intorno al sole. Per identificare i fattori che creano questo ritmo e per comprendere le uscite risultanti, è necessario l'intrappolamento degli organismi modello ai punti di tempo circadiani definiti. Qui dettagliamo una procedura per intrappolare molti Drosophila ad un ritmo circadiano definito. Inoltre, dettagliamo le fasi post-ingresso per preparare i campioni per l'immunofluorescenza, l'acido nucleico o l'analisi basata sull'estrazione delle proteine.
Introduzione
Quasi tutti gli organismi sulla Terra, dal più grande fino a un singolo cellulare, hanno un orologio biologico interno con un ciclo di circa un giorno. Questo è conosciuto come il ritmo circadiano (coniato nel 1953 da Franz Halberg dai termini latini circa / circa / circa e "dies" - giorno)1. Anche se i componenti dell'orologio di base sono noti e i loro meccanismi rudimentali di funzione concettualizzati, c'è ancora molto da capire su come i ritmi biologici sono mantenuti in tutto il corpo. È importante sottolineare che la errata regolamentazione dei ritmi biologici è associata a scarsi esiti disalute,tra cui scarsaformazione dellamemoria, disturbi del sonno, disturbo affettivo stagionale, depressione, disturbo bipolare, diabete, obesità, neurodegenerazione e cancro2,3,4,5.
La Drosophila è un modello consolidato per lo sviluppo della biologia circadiana. Geneticamente e biochimicamente trattabile, un gran numero di persone è facilmente intrappolato (come verrà mostrato). Infatti, tutte e sette le pubblicazioni citate come pubblicazioni chiave di sostegno nell'assegnazione del Premio Nobel per la scoperta dei ritmi circadiani hanno sfruttato questi punti di forza del modello Drosophila6,7,8,9,10,11,12.
Inoltre, mostriamo strategie efficaci per raccogliere mosche intrappolate ai fini dell'immunofluorescenza, dell'acido nucleico o dell'analisi basata sull'estrazione delle proteine. Utilizzando queste strategie, si possono elaborare e memorizzare grandi quantità di campioni per l'analisi in futuro. Questi metodi sono molto vantaggiosi in quanto sono riproducibili e possono produrre centinaia di mosche entrate che possono far parte di un pool di dati di grandi dimensioni.
Protocollo
1. Produzione alimentare a mosca
- Ogni 1 L di acqua, preparare il cibo a mosca composto da 4,69 g di melassa essiccata, 19,70 g di lievito attivo secco, 87,22 g di farina di mais e 7,83 g di agar.
- Unire il contenuto sopra elencato in un crockpot e trasformare il calore a 250 gradi centigradi. Mescolare bene come gli ingredienti sono aggiunti.
- Tenere il coperchio sul crockpot come il cibo mosca si riscalda, mescolando anche il contenuto ogni 10 minuti fino a raggiungere un ebollizione rotolamento. Lasciare che l'ebollizione continui per 20 minuti prima di spegnere il fuoco.
- Aggiungere 83,60 mL di acqua e tenere il coperchio del crockpot fuori come il cibo si raffredda.
- Mescolare e registrare la temperatura del cibo ogni 10 minuti con un termometro di vetro. Evitare di lasciare che uno strato di pellicola si stabilisca in cima al cibo.
- Una volta che il cibo si è raffreddato a 60 gradi centigradi, aggiungere 10,44 mL di Tegosept e 5,51 mL di acido propionico per litro di acqua aggiunta (vedere il punto 1.1).
- Mescolare bene e riscaldare fino a 60 gradi centigradi per evitare che il cibo diventi troppo fresco.
- Pompare il cibo a mosca secondo necessità utilizzando il Droso-filler.
- Per fiale strette, pompa 10 mL e per 6 oz bottiglie di fondo quadrato pompa 60 mL.
2. Raccogliere mosche di età definita
- Monitorare le bottiglie di mosche di tipo selvatico conservate a 25 gradi centigradi per 5-7 giorni fino a quando grandi quantità di pupa (circa 200 pupa) sono attaccate al lato della bottiglia. Le bottiglie utilizzate sono bottiglie di brodo Drosophila da 6 oz con fondo quadrato.
- Cancellare gli adulti esistenti dalla bottiglia. O versare gli adulti in una nuova bottiglia o metterli in 70% etanolo. Utilizzare l'estremità opaca di #0 pennello per spingere gli adulti rimanenti nel cibo mosca. Assicurarsi di pulire il pennello verso il basso con 70% etanolo prima e dopo gli usi.
- Lasciare riposare le bottiglie sgomberate per 3 giorni in un'incubatrice di 25 gradi centigradi per consentire la chiusura della prossima generazione. Queste mosche avranno tra 0 e 3 giorni.
3. Separazione del volo
- Dopo 3 giorni, separare i maschi dalle femmine e raccogliere il numero desiderato per ogni sesso per ciascuno dei quattro punti di tempo. Le mosche possono essere differenziate dal sesso esaminando i genitali; i maschi hanno genitali arrotondati scuri, mentre le femmine hanno genitali più chiari e più appuntiti. Le femmine sono anche molto più grandi delle mosche maschili.
- Utilizzare uncuscinetto di anestesia CO 2 per separare efficacemente le mosche e distinguere tra i sessi. Spostare le mosche con pennelli di vernice per evitare di ucciderli.
- Raccogliere 100 maschi e 100 femmine per ogni punto di tempo, con 50 maschi per fiala e 100 femmine per fiala. I maschi tendono ad essere più aggressivi e le loro interazioni sociali portano a un sacco di morti quando ci sono 100 individui in una fiala. Le femmine- fino a 100 individui- non sono influenzate mentre sono contenute nella fiala.
- Eseguire le raccolte nei seguenti punti di tempo: T1, T7, T13 e T19 (Tabella 1). Si noti che le collezioni fatte al buio (T12- T24) sono sensibili alla luce, mentre le collezioni di T0-T11 vengono eseguite durante gli orari delle luci e le luci della stanza possono essere accese. Si prega di notare che due incubatori separati vengono utilizzati con modelli di luce inversa di 12 ore per consentire a tutte le collezioni di verificarsi durante il giorno e non durante la notte.
- Utilizzare mosche in eccesso per creare nuove bottiglie di mosche per l'intrappolamento futuro. Mettere 25 femmine con 5-7 maschi in ogni nuova bottiglia e mettere nell'incubatrice a 25 gradi centigradi.
4. Vola incubazione
- Lasciare che le mosche rimangano in incubatrici regolate leggere per 3-5 giorni per consentire l'intrappolamento circadiano. Garantire che le incubatrici siano a tenuta leggera perché anche piccole quantità di inquinamento luminoso disturbano l'intrappolamento.
5. Fissazione dell'immunofluorescenza
- Dopo l'intrappolamento, preparare nuove fiale di soluzione di fissazione per i campioni che verranno utilizzati per l'immunofluorescenza. Prima di rimuovere i moscerini dall'incubatrice, aggiungere 4,8 mL del 4% di formaldeide diluita in 1x PBS - 0,1% Tween-20 a ogni nuova fiala stretta per ogni 100 mosche che devono essere fissate. Ogni fiala ospita 100 mosche operate circadiane maschili o 100 femmine. Posizionare le fiale strette nel ghiaccio.
6. Raccolta di immunofluorescenza
- Quando si raccolgono le mosche dall'incubatrice per l'immunofluorescenza, rimuovere il tappo della bottiglia e invertire rapidamente la bottiglia nell'imbuto. Toccare delicatamente le mosche nella soluzione tramite l'imbuto per guidare le mosche nella fiala; combinare due tubi dei 50 maschi per un totale di 100 maschi in una fiala e utilizzare un singolo tubo di 100 femmine per l'altra fiala.
- Eseguire le collezioni T13 e T19 al buio; utilizzare una luce rossa per vedere come drosophila sono molto meno sensibili a queste lunghezze d'onda della luce e sono quindi meno inclini all'inquinamento luminoso13. La proteina Cryptochrome, in particolare, è particolarmente sensibile alla luce blu, che deve essere evitata14.
- Per ridurre l'esposizione alla luce, assicurarsi che la stanza di raccolta sia leggera e con qualsiasi fonte di luce bloccata o coperta. Avvolgere queste fiale in un foglio in modo che le mosche T13 e T19 non siano esposte alla luce quando vengono poste sul miscelatore di nutating nel passaggio successivo. Le mosche T1 e T7 non sono sensibili alla luce e possono essere posizionate sul mixer senza rivestimento di lamina.
7. Miscelatore e stoccaggio
- Dopo che le mosche sono state raccolte, nastro la parte superiore delle fiale contenenti fissativo per evitare fuoriuscite e metterli sul mixer nutating a 165 RPM a 4 gradi centigradi per 4 h. Le mosche non sono più sensibili alla luce dopo questa fase di fissazione, quindi la lamina può essere rimossa per verificare che la soluzione si muove e le mosche vengono sommerse nel fissativo.
- Dopo aver rimosso la mosca contenente fiale dal miscelatore nutating rimuovere la formaldeide e lavare tre volte con 3.000 L di 1x PBS, invertendo la fiala con ogni lavaggio.
- Conservare le fiale con campioni di immunofluorescenza a 4 gradi centigradi per attendere la futura immunofluorescenza15.
8. Raccolta per l'estrazione delle proteine
- Preparare quattro tubi da 50 mL e un dewar contenente azoto liquido per la conservazione dei campioni per l'estrazione delle proteine
- Per la raccolta di mosche per l'estrazione di proteine o acidi nucleici, trasferire le mosche dalle bottiglie al tubo nello stesso modo di cui al punto 6.1 e bloccare rapidamente il tubo per impedire il rilascio di mosche e posizionare il tubo in azoto liquido per bloccare.
9. Stoccaggio per l'estrazione delle proteine
- Conservare i campioni congelati a scatto per l'estrazione delle proteine a -80 gradi centigradi. Questi possono essere elaborati secondo il protocollo di estrazione delle proteine appropriato per l'analisi a valle, compreso l'immunoblotting16.
Risultati
L'intrappolamento circadiano controllato consente ai ricercatori di esaminare la biologia in punti orari specifici durante il giorno circadiano utilizzando gli orari di T1-T19 o di aggiungere punti di tempo, se necessario. Qui usiamo la luce e l'oscurità per intrappolare le mosche ai cicli circadiani e verificare l'intrappolamento mediante l'immunoblotting e l'analisi dell'immunofluorescenza della proteina d'inietta del periodo, un marcatore per l'intrappolamento circadiano (Figura 1). Al momento della corretta intrappolamento, le proteine del periodo devono avere un modello di intensità e mobilità caratteristica (Figura 1A) e devono essere visibili in posizioni specifiche nel cervello di T1 (Figura 1B). Anche se altre variabili, tra cui cibo e temperatura, possono influenzare l'intrappolamento circadiano, la luce è più semplice e affidabile per controllare17. Ai fini di questi metodi, le temperature dell'incubazione sono mantenute costanti, basandosi su neuroni dell'orologio cerebrale che sono influenzati dalla luce per l'intrappolamento18.
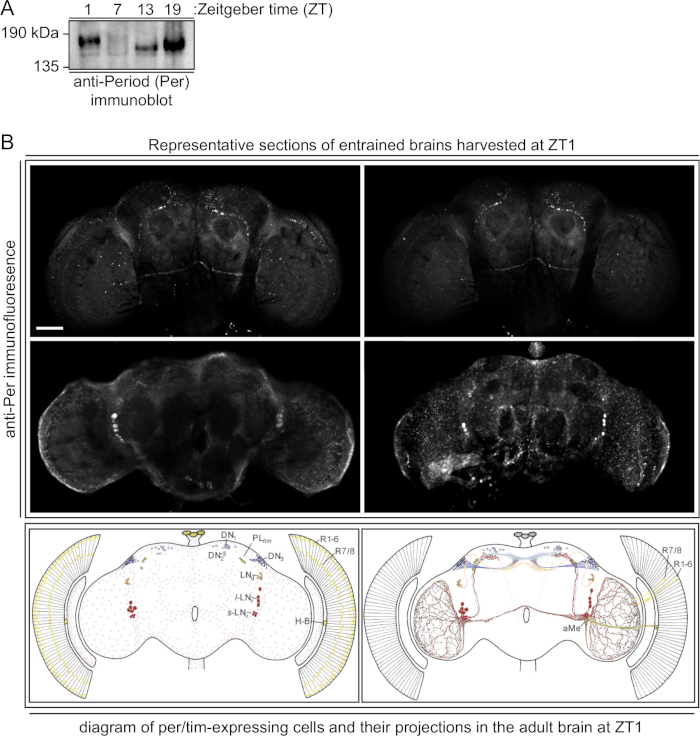
Figura 1: Verifica dell'intrappolamento. (A) L'immunoblotting di estratti di cellule intere preparate dalle teste di mosche intrappolate mostra modelli canonici di mobilità proteica d'inizio e intensità19. 1,4 teste femminili provenienti da ciascuna delle volte indicate da zeitgeber (T) sono state analizzate utilizzando un anticorpo anti-Per. (B) Immunofluorescenza dei cervelli intrappolati raccolti a T, dove la proteina del Periodo si trova in un modello caratteristico (pannelli inferiori, ricreati da Helfrich-Forster20). Le immagini tratte da diverse sezioni del cervello, che catturano tutti i neuroni che si prevede contengano proteine del periodo a T1. La barra della scala è di 40 m. Fare clic qui per visualizzare una versione più grande di questa figura.
| T1 | T7 | T13 | T19 |
| Luce tra le 10:00 e le 22:00 | Luce tra le 10:00 e le 22:00 | Buio tra 9 am - 9 pm | Buio tra 9 am - 9 pm |
| Raccolto alle 11 dopo 1 ora di luce | Raccolto alle 17 dopo 7 ore di luce | Raccolto alle 10 del mattino dopo 1 ora al buio | Raccolto alle 16:00 dopo 7 ore al buio |
Tabella 1: Orari di cronometraggio circadiano T1-T19.
Discussione
I ricercatori utilizzano questo protocollo di ingresso con successo e coerenza. Questa procedura consente la fissazione di un pool di campionamento di grandi dimensioni che può essere archiviato per analisi future. Inoltre, questa strategia preserva i modelli neurologici indotti dall'intrappolamento per un esame futuro.
La fissazione per lo stoccaggio è una componente importante del processo di intrappolamento in quanto aiuta a stabilizzare il tessuto cerebrale e consente più tempo per analizzare ogni cervello dal pool di dati riducendo così al minimo i rifiuti dal cervello che perdono vitalità a causadell'età 21. L'obiettivo principale è quello di circadiano entrain il maggior numero possibile di mosche in modo che ci sia inventario continuo disponibile per dissezioni della testa e, in ultima analisi, immunofluorescenza o estrazione di proteine per osservare i risultati e determinare se i risultati sono di alta fiducia. Per garantire che l'intrappolamento circadiano sia preservato attraverso la fissazione, è parte integrante dell'eliminazione di qualsiasi fonte di inquinamento luminoso. Il processo di fissazione consente di immagazzinare la Drosophila mantenendo il suo "timestamp" neurologico in modo che possano essere sezionati in seguito e analizzati senza differenze evidenti per le mosche che vengono sezionate e hanno subito l'immunofluorescenza immediatamente dopo l'ingresso. Ai fini della fissazione prima dell'immunofluorescenza, il laboratorio ha determinato con coerenza che le mosche sono vitali almeno fino a 1 mese. Le fissazioni per l'estrazione di proteine delle macchie occidentali rendono i cervelli vitali a tempo indeterminato se conservati a -80 gradi centigradi.
Un altro passo critico del protocollo è il sexing delle mosche. È importante che questo passaggio sia fatto con precisione poiché avere entrambi i sessi nella stessa fiala prima della fissazione può portare all'accoppiamento, che produrrà nuove mosche che sono di età più giovane e analisi delle proteine corrotte se i maschi vengono esaminati accidentalmente al posto delle femmine o viceversa. Inoltre, quando si fa sesso è importante rimuovere campioni di larve che sono a volte attaccati alle femmine. Questo impedisce lo sviluppo di nuova progenie all'interno della fiala femminile che potrebbe potenzialmente corrompere i risultati.
Il passaggio successivo per il protocollo di ingresso potrebbe essere con gli elementi correlati all'analisi dei dati. L'obiettivo del protocollo è la localizzazione delle proteine, ma se ci sono altre variabili che sono influenzate dall'intrappolamento circadiano, devono essere esplorate attraverso nuove vie, spesso che richiedono l'estrazione di proteine o acidi nucleici. Inoltre, ci sono altre proteine del cervello che possono ancora essere analizzate tramite questo protocollo. Gli esperimenti associati al protocollo hanno analizzato alcune proteine, ma l'elenco dei geni e delle proteine che svolgono un ruolo nella biologia circadiana non è stato esaurito. Il protocollo è efficace nel raggiungere l'obiettivo di stabilire un ritmo circadiano, tuttavia, le applicazioni sono ad ampio raggio.
Ringraziamenti
Un ringraziamento speciale all'Università del Missouri-Kansas City e al laboratorio Jeffrey L. Price.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Pipetta 100-1000uL | Eppendorf | ES-1000 | |
| Pipetta 10-100uL | Eppendorf | ES-100 | |
| Soluzione di paraformaldeide al 16% | 15710 | ||
| 1X PBS | Caisson Labs | PBL01-6X100ML | |
| Agar | Fisher Scientific | BP1423500 | |
| World Precision Instruments | EZ-251A | ||
| Farina di mais | Genesee Scientific | 62-100 | |
| Melassa essiccata | Food Service | ||
| Droso-filler Pompa per alimenti | geneseesci.com | 59-169 | |
| Drosophila Bottiglie di stock, 6 once a fondo quadrato con Flugs | geneseesci.com | 32-130BF | |
| Fiale di Drosophila, K-Resin stretta super bulk | geneseesci.com | 32-118SB | |
| Lievito attivo secco | Genesee Scientific | 62-103 | |
| Etanolo | IBI Scientific | IB15720 | |
| EZ Sistema di anestesia di base World | Precision Instruments | EZ-175 | |
| Falcon Provette per centrifuga | Corning | 352097 | |
| Falcon | Corning | ||
| Pennarello Sharpie a punta fine | Sharpie | 30001 | |
| Fisherbrand Miscelatore nutante | Fisher Scientific | 88-861-043 | |
| Flags-Narrow Fiale di plastica | Genesee Scientific | 49-102 | |
| Termometro in vetro | Cole-Palmer | EW-08008-12 | |
| Tubo flessibile per azoto liquido | Thermo Scientific | 398202 | |
| Serbatoio di azoto liquido-Dewar | Cooper Surgical Inc | 900109-1 | |
| Recipiente di trasferimento di azoto liquido | Scienze della microscopia elettronica | 61891-02 | |
| Pennelli (zibellino rosso) Dimensione #0 | Scienze dell'elettromicroscopia | 66100-00 | Questo viene utilizzato per separare le mosche attraverso il sesso senza causare lesioni. |
| Imbuto in plastica | Plews e Edelmann | 570-75-062 | |
| Microscopio a luce polarizzante | Microscopio 1100100402241 centrale | Utilizzato per visualizzare più chiaramente la Drosophila durante il sessaggio | |
| Puntali per pipette ProPette MTC | Bio Incorporated | P5200-100U | |
| Puntali per pipette ProPette | MTC Bio Incorporated | P5200-1M | |
| Puntali per pipette ProPette | MTC Bio Incorporated | P5200-5M | |
| Acido propionico | Sigma Aldrich | P1386-1L | |
| Palline di rayon | Genesee Scientific | 51-100 | |
| Reynolds avvolgere un foglio di alluminio standard | Graffe | 1381273 | |
| Forno per torrefazione (Crockpot) | Hamilton Beach | 32950 | |
| Scotch 810 Magic Tape Scienze | microscopia elettronica | 77300 | |
| Flacone spray con grilletto | US Plastic | 66446 | Utilizzato per spruzzare etanolo per pulire le aree di piegatura di lavoro |
| Tegosept | Genesee Scientific | 20-258 | |
| Thermo Scientific Incubatore per drosophila | Thermo Scientific | 3990FL | |
| Thermo Scientific Revco Frigorifero da laboratorio a 4 gradi | ThermoFisher Scientific | REL7504D | |
| Thermo Scientific Congelatore da laboratorio Revco | ThermoFisher Scientific | REL7504A | |
| Tween 20 | Anatrace | T1003-1-GA |
Riferimenti
- Halberg, F. Some physiological and clinical aspects of 24-hour periodicity. The Journal-Lancet. 73 (1), 20-32 (1953).
- Smarr, B. L., Jennings, K. J., Driscoll, J. R., Kriegsfeld, L. J. A time to remember: the role of circadian clocks in learning and memory. Behavioral Neuroscience. 128 (3), 283-303 (2014).
- Leng, Y., Musiek, E. S., Hu, K., Cappuccio, F. P., Yaffe, K. Association between circadian rhythms and neurodegenerative diseases. The Lancet. Neurology. 18 (3), 307-318 (2019).
- Hood, S., Amir, S. Neurodegeneration and the Circadian Clock. Frontiers in aging Neuroscience. 9, 170(2017).
- Sulli, G., Lam, M. T. Y., Panda, S. Interplay between Circadian Clock and Cancer: New Frontiers for Cancer Treatment. Trends in Cancer. 5 (8), 475-494 (2019).
- Zehring, W. A., et al. P-element transformation with period locus DNA restores rhythmicity to mutant, arrhythmic Drosophila melanogaster. Cell. 39 (2 Pt 1), 369-376 (1984).
- Bargiello, T. A., Jackson, F. R., Young, M. W. Restoration of circadian behavioural rhythms by gene transfer in Drosophila. Nature. 312 (5996), 752-754 (1984).
- Siwicki, K. K., Eastman, C., Petersen, G., Rosbash, M., Hall, J. C. Antibodies to the period gene product of Drosophila reveal diverse tissue distribution and rhythmic changes in the visual system. Neuron. 1 (2), 141-150 (1988).
- Hardin, P. E., Hall, J. C., Rosbash, M. Feedback of the Drosophila period gene product on circadian cycling of its messenger RNA levels. Nature. 343 (6258), 536-540 (1990).
- Liu, X., et al. The period gene encodes a predominantly nuclear protein in adult Drosophila. Journal of Neuroscience. 12 (7), 2735-2744 (1992).
- Vosshall, L. B., Price, J. L., Sehgal, A., Saez, L., Young, M. W. Block in nuclear localization of period protein by a second clock mutation, timeless. Science (New York, N.Y). 263 (5153), 1606-1609 (1994).
- Price, J. L., et al. double-time is a novel Drosophila clock gene that regulates period protein accumulation. Cell. 94 (1), 83-95 (1998).
- Hanai, S., Hamasaka, Y., Ishida, N. Circadian entrainment to red light in Drosophila: requirement of Rhodopsin 1 and Rhodopsin 6. Neuroreport. 19 (14), 1441-1444 (2008).
- Vinayak, P., et al. Exquisite light sensitivity of Drosophila melanogaster cryptochrome. PLoS Genetics. 9 (7), e1003615(2013).
- Kelly, S. M., Elchert, A., Kahl, M. Dissection and Immunofluorescent Staining of Mushroom Body and Photoreceptor Neurons in Adult Drosophila melanogaster Brains. Journal of Visualized Experiments. (129), e56174(2017).
- Au-Eslami, A., Au-Lujan, J. Western Blotting: Sample Preparation to Detection. Journal of Visualized Experiments. (44), e2359(2010).
- Fan, J. Y., Muskus, M. J., Price, J. L. Entrainment of the Drosophila circadian clock: more heat than light. Science's signal Transduction Knowledge Environment. (413), pe65(2007).
- Miyasako, Y., Umezaki, Y., Tomioka, K. Separate sets of cerebral clock neurons are responsible for light and temperature entrainment of Drosophila circadian locomotor rhythms. Journal of Biological Rhythms. 22 (2), 115-126 (2007).
- Edery, I., Zwiebel, L. J., Dembinska, M. E., Rosbash, M. Temporal phosphorylation of the Drosophila period protein. Proceedings of the National Academy of Sciences of the United States of America. 91 (6), 2260-2264 (1994).
- Helfrich-Forster, C. The neuroarchitecture of the circadian clock in the brain of Drosophila melanogaster. Microscopy Research and Technique. 62 (2), 94-102 (2003).
- Price, J. L. Genetic screens for clock mutants in Drosophila. Methods in Enzymology. 393, 35-60 (2005).
Ristampe e permessi
