在此,我们介绍一种用于生成大鼠肠道类器官并将其应用于多种下游实验的方案。大鼠常被作为首选的临床前模型,而稳定的肠道类器官系统填补了该领域对一种可靠的体外模型的需求。 体外 系统以配合 体内 研究。
本文内容
摘要
摘要
在利用类器官评估生理功能和细胞命运决定时,重要的是要使用能够紧密模拟 体内 在多种研究背景下,患者来源的类器官被广泛用于疾病建模、药物发现以及个体化治疗方案的筛选。小鼠肠道类器官常被用于研究肠道功能/生理特性以及干细胞动态/命运决定的相关机制。然而,在许多疾病研究中,由于大鼠在疾病病理生理方面与人类具有更高的生理相似性,通常比小鼠更适合作为模型动物。大鼠模型的应用受限于目前可用的遗传学工具较少 体内,且大鼠肠道类器官已被证明较为脆弱,难以进行长期培养。本文在已有发表方案的基础上,建立了从十二指肠和空肠 robust 地生成大鼠肠道类器官的方法。我们概述了大鼠肠道类器官的多种下游应用,包括功能性的肿胀实验、整体染色(whole mount staining)、二维肠类器官单层的构建以及慢病毒转导。大鼠类器官模型为该领域提供了一种切实可行的解决方案,以满足对一种 体外 一种在生理上与人类具有相关性、可快速进行遗传操作、且易于获取而无需克服获取人肠道类器官所涉及障碍的模型。
引言
人类小肠上皮结构和细胞组成复杂,反映了其生理功能。小肠的主要功能是吸收通过肠腔的食物中的营养物质。1为最大化这一功能,肠黏膜表面形成指状突起结构,称为绒毛,可增加吸收表面积;同时还形成杯状隐窝结构,称为隐窝,用于容纳和保护干细胞。在上皮层内,生成多种特化的吸收细胞和分泌细胞,以执行不同的功能1由于这种复杂性,利用高代次转化的永生化细胞系来模拟肠道等组织一直存在困难。然而,干细胞尤其是成体干细胞及其分化机制的研究,推动了三维肠道类器官培养技术的发展。类器官模型的应用已彻底改变了该研究领域,部分原因在于其能够重现完整肠道中某些结构特征和细胞类型的异质性。肠道类器官可实现长期培养 体外 由于活性干细胞群体的维持2.
肠道类器官已迅速成为研究干细胞生物学、细胞生理学、遗传性疾病和营养学的可调模型3,4,同时也被用作开发新型药物递送方法的工具5。此外,来源于患者的类器官正被用于疾病建模、药物发现以及个体化治疗筛选等多个领域6,7,8,9。然而,人类肠道类器官仍面临诸多挑战。组织来源的可获得性、机构审查委员会(IRB)审批要求以及伦理问题限制了人类样本的广泛应用。此外,由肠隐窝来源的人类肠道类器官需要两种不同的培养条件,分别用于维持未分化的干细胞或诱导成熟细胞类型的分化10。这与体内(in vivo)情况形成对比,在体内环境中,干细胞与成熟的分化细胞类型同时存在,并持续生成和维持1。相比之下,小鼠肠道类器官在成分较简单的生长因子混合物中培养,无需更换培养基成分,即可在同一培养环境下同时维持干细胞和分化细胞2,11。然而,小鼠肠道与人类肠道之间存在关键差异,使得小鼠类器官在许多情况下并非理想的模型。总体而言,目前已成功在体外培养出多种大型哺乳动物的肠道类器官,包括马、猪、绵羊、牛、狗和猫,其培养条件更接近小鼠肠道类器官,而非人类肠道类器官的培养条件12。小鼠与人类类器官在生长因子需求上的差异,可能反映了两者在干细胞微环境组成以及干细胞存活、增殖和维持所需条件方面的不同。因此,亟需一种易于获取的类器官模型系统,该系统应具备以下特点:1)细胞组成高度类似于人类肠道;2)其干细胞对生长因子的需求与人类肠道类器官相似;3)能够持续维持未分化和已分化细胞区室。理想情况下,该系统应来源于常用的临床前动物模型,以便体外(in vitro)实验结果可与体内(in vivo)实验相互印证并联合使用。
大鼠是肠道生理学和药理学研究中常用的临床前模型,因为其肠道生理和生化特性与人类非常相似13,尤其是在肠道通透性方面14。与小鼠相比,大鼠体型相对较大,更便于进行外科手术操作。尽管有时也会使用包括猪在内的大型动物模型,但大鼠模型成本更低,饲养所需空间较小,且有多种标准化品系可从商业渠道 readily 获得15。使用大鼠模型的一个缺点是,与小鼠相比,适用于体内(in vivo)研究的遗传工具包尚未充分发展,构建新的大鼠品系(包括基因敲除、基因敲入和转基因品系)通常成本过高而难以实现。建立并优化稳健的大鼠肠道类器官模型,将能够在保持重要生理相关性的可及性模型中,实现基因操作、药理处理以及高通量研究。然而,不同啮齿类动物类器官模型之间的优势高度依赖于所研究的具体过程或基因;某些在人类中存在的基因在小鼠中可能是假基因,但在大鼠中则不是16,17。此外,单细胞RNA测序(single-cell RNAseq)正不断揭示出物种特异性的细胞亚型18,19,20。最后,大鼠和小鼠的肠道疾病模型在表型上常常表现出显著差异21,22,因此必须选择更能准确模拟人类症状和疾病进程的模型用于后续研究。建立大鼠肠道类器官模型为研究人员提供了更大的灵活性和选择空间,以根据其具体研究条件选用最合适的模型系统。本文在现有方案23,24的基础上,进一步拓展了大鼠肠道类器官的构建方法,并详细阐述了从十二指肠或空肠建立和维持大鼠肠道类器官的实验流程。此外,还描述了若干下游应用技术,包括慢病毒转导、整体染色(whole mount staining)以及佛司可林诱导肿胀实验(forskolin swelling assays)。
方案
注意:所有细胞培养操作均应在生物安全柜中使用适当的无菌技术进行。本研究中的所有动物实验均经耶鲁大学机构动物护理和使用委员会(IACUC)批准。
1. 细胞培养试剂的准备
- 按照制造商说明制备R-spondin 1条件培养基。按照制造商说明制备Wnt3a条件培养基。按表1所述配制AdDMEM+。
- 将胃泌素溶于无菌dH2O中,配制成100 µM的储存液。分装后于-80 °C保存。将N-乙酰半胱氨酸溶于无菌水中,配制成100 mM的储存液。分装后于-20 °C保存,最多可保存1个月。
- 将重组人Noggin溶于含0.1%牛血清白蛋白(BSA)的磷酸盐缓冲液(PBS)中,配制成250 µg/mL的储存液。分装后于-80 °C保存。将重组小鼠表皮生长因子(EGF)溶于含0.1% BSA的PBS中,配制成100 µg/mL的储存液。分装后于-80 °C保存。
- 将重组人IGF-1用含0.1% BSA的PBS稀释,配制成100 µg/mL的储存液。分装后于-80 °C保存。将重组人FGF-2溶于5 mM Tris(pH 7.6)中,配制成100 µg/mL的储存液。分装后于-80 °C保存。
注意:所有生长因子均需先用含0.1% BSA的PBS稀释至培养基终浓度的100倍,作为中间工作液,于-20 °C保存。
2. 大鼠小肠类器官的建立
注意:本方案修改自先前发表的两项大鼠肠道类器官培养方案23,24。
- 按照以下步骤制备大鼠肠道类器官培养基(rIOM) 表2 并将水浴设置为 37 °C。该完全培养基在 4 °C 下可稳定保存 5 天。
- 在15 mL锥形管中配制10 mL含3 mM乙二胺四乙酸(EDTA)的PBS溶液,置于冰上保存。将250 µL细胞外基质提取物(EME)在冰上解冻。
- 过夜禁食大鼠,可自由饮水 随意摄取 根据IACUC批准的方案处死大鼠。本方案中,处死了体重约200 g的成年雄性Sprague Dawley大鼠 通过 CO2 吸入(材料表颈椎脱位作为安乐死的辅助方法。
- 使用无菌高压灭菌的镊子和解剖剪进行解剖。将已实施安乐死的大鼠仰卧置于解剖台面上。用镊子夹起皮肤层;后续切割操作应在表层进行,仅切开皮肤层,深度不应足以损伤内脏器官。
- 使用大型锋利的解剖剪,在腹部中央沿纵轴方向对皮肤层进行一次大面积的表层纵向切开。接着,从该切口两端分别向两侧各做一条较短的横向切口。用镊子将皮肤剥离,以暴露腹腔。切开腹膜,充分暴露腹腔内的内脏器官,以便于接触肠道。
- 使用剪刀和镊子找到胃,并在其远端约2-3 cm处识别出呈黄白色段落的十二指肠。空肠近端位于屈氏韧带远端约4-5 cm处,该韧带是十二指肠与空肠之间的解剖学标志。
- 将分离的肠段放入一个10 cm的培养皿中。尽可能清除目标肠段上的肠系膜组织。用10 mL预冷的PBS冲洗,直至腔内内容物清除干净。在纸巾上将肠段切成约2 cm长的小段。沿纵轴切开每段肠组织,以暴露上皮层。
- 使用玻璃载玻片刮除暴露的管腔表面以去除绒毛。将肠段放入预冷的EDTA溶液中,置于冰上。在4 °C下以10 rpm转速于旋转仪中旋转孵育30分钟。
- 在解剖显微镜下,将锥形管中的内容物倒入一个10 cm的培养皿中。加入约5 mL冰冷的PBS。
- 使用精细镊子夹住一段肠组织并剧烈振荡,可见上皮组织释放到PBS中。最初,PBS中主要含有绒毛。
- 继续振荡。定期弃去含有绒毛的PBS,并向肠片段中加入10 mL新鲜的冰冻PBS。继续振荡组织片段,并重复此洗涤步骤,直至PBS中不再释放绒毛,而主要含有隐窝。隐窝分离过程不得超过15分钟,以避免细胞活力受损。
- 弃去剩余的肠段碎片。收集培养皿中含肠隐窝的 PBS 液体。在组织培养超净台中,收集含有隐窝的 PBS 液,并通过 70 µm 细胞滤网过滤(材料表).
- 以 250 x g 离心 g 5分钟。弃上清,将沉淀重悬于5 mL AdDMEM+中,再次于250 x g 5 分钟。
注意:建议使用配备摆桶转子的离心机。 - 移除上清液,保留约 50 µL 培养基与沉淀一同留下。用剩余的培养基重悬沉淀,并将其加入冰上的 EME 分装液中。轻轻吹打混匀,使隐窝均匀分散于 EME 中。避免产生气泡。
- 将50 µL EME半球形结构接种至35 mm组织培养皿中,在37 °C、5% CO₂条件下孵育20分钟2 组织培养箱
- 加入2 mL rIOM(表2) 含有 10 µM Y27632 和 10 µM CHIR99021(表3传代后,可停止使用 Y27632 和 CHIR99021。
- 每隔2-3天更换一次rIOM。根据需要进行传代,通常每3-7天一次,具体时间取决于类器官的初始数量、大小和生长速度。
3. 大鼠肠道类器官的传代
- 将250 µL EME在冰上解冻,并将rIOM预热至37 ˚C。
- 吸除含有类器官的35 mm培养皿中的培养基,加入1 mL解离试剂,立即释放类器官脱离EME凝胶滴。
- 立即将含有破碎类器官的解离试剂转移至15 mL锥形管中。用2 mL AdDMEM+洗涤培养皿,并将洗涤液加入含有破碎类器官的15 mL锥形管中。
- 使用玻璃巴斯德吸管轻柔吹打15–20次以进一步破碎类器官。在350 × g 条件下离心2分钟。
- 从锥形管底部吸取约50 µL溶液加入EME中,轻柔吹打混匀,避免产生气泡。
- 将50 µL EME凝胶滴接种至35 mm培养皿中,在37 °C、5% CO2的细胞培养箱中孵育20分钟。
- 加入含10 µM Y27632和10 µM CHIR99021的2 mL rIOM。每2–3天更换一次培养基;换液时可省略Y27632和CHIR99021。
4. 大鼠肠道类器官的冷冻保存与复苏
- 大鼠肠道类器官的冷冻保存
注意:本冷冻保存方案参考了先前用于人和小鼠类器官的方案25。在冷冻前,类器官必须已在原代培养中传代至少两次。建议在冷冻前将类器官培养至形成较大球状体或轻微出芽的状态,这有助于提高解冻后存活类器官的产量。可通过将R-spondin条件培养基比例提高至15%,和/或在类器官培养体系中添加10 mM烟酰胺(表3)来实现该状态。- 在显微镜下计数35 mm培养皿中的类器官数量。标记冻存管,使每管分装200个类器官。
- 移除35 mm培养皿中的rIOM培养基,加入2 mL冷的组织培养级PBS。
- 使用P1000枪头,通过反复吹打将EME凝胶从培养皿底部释放至PBS中。上下吹打约20次,以充分解离EME并释放类器官。将含有类器官的PBS收集至15 mL锥形离心管中。
- 向培养皿中再加入2 mL冷PBS,反复吹打以收集残留的类器官,并将PBS转移至同一15 mL锥形离心管中。
- 在290 × g 条件下离心5分钟,使类器官沉淀。小心吸除上清液,避免扰动类器官沉淀。
- 用5 mL冷的AdDMEM+培养基轻柔重悬沉淀,进行洗涤。在200 × g 条件下离心4分钟,小心吸除并弃去上清液。
- 每200个类器官用1 mL冷的冷冻保存液重悬。将含类器官的冷冻保存液按每管1 mL分装至已标记的冻存管中。将冻存管放入程序降温盒中。
- 将冻存管置于-80 °C冰箱中保存24小时,随后转移至液氮中进行长期保存。
- 大鼠肠道类器官的解冻
注意:本解冻方案参考了先前用于人和小鼠肠道类器官解冻的方案26。- 将250 µL EME置于冰上解冻。准备含有15% R-spondin条件培养基、10 µM Y27632和10 µM CHIR99021的rIOM培养基,并在37 °C预热。
- 在室温下,向15 mL锥形离心管中加入2 mL解冻培养基(表3)。
- 从液氮中取出一管类器官,将其放入37 °C水浴中,直至冻存管几乎完全解冻。
- 向冻存管中加入1 mL解冻培养基,将全部内容物转移至含有解冻培养基的锥形离心管中。用1 mL解冻培养基洗涤冻存管两次,并将洗涤液一并转移至锥形离心管中。
- 在200 × g 条件下离心5分钟。吸除上清液,保留约50 µL液体与类器官一同留存。将含有类器官的液体转移至250 µL EME中。
- 通过上下吹打使类器官在EME中均匀分布,避免产生气泡。将六份50 µL的EME-类器官混合物均匀点样于35 mm组织培养皿中,形成六个凝胶小滴。
- 将培养皿放入组织培养孵箱中孵育15–20分钟,使EME充分聚合。随后向培养皿中加入2 mL预热的rIOM培养基。
- 两天后,更换为普通rIOM培养基,可停止使用Y27632和CHIR99021。解冻后的首次传代中类器官生长可能较慢。建议在开始实验前,先将类器官连续传代两次。
5. 从三维类器官生成大鼠肠道二维单层细胞
注意:以下方案描述了使用 EME 包被 48 孔板制备 24 个孔所需的体积,起始材料为六个含有约 300 个肠类器官/滴(50 µL,35 mm 培养皿)的凝胶滴(比例:一滴可生成四个孔),但可根据需要进行放大或缩小。按照本方案操作,细胞在 4–5 天内达到约 80% 的汇合度。当汇合度过高时,细胞将重新开始形成三维类器官结构;而在低汇合度(≤40%)条件下,细胞保持为单层,并可维持活性约 14 天。如果研究目的是使用二维单层细胞,应缩小比例,使一滴生成 24 孔板中的八个孔。此外,这些孔也可用 I 型胶原包被以形成单层细胞。
- 包被表面的制备
- 使用EME包被培养板时,将EME用冷的AdDMEM+按1:20稀释(见表1)。若使用胶原蛋白包被,则按照生产商说明书配制I型胶原蛋白。将5 mg/mL的I型胶原蛋白用AdDMEM+稀释至100 µg/mL(本例中为1:50)。
- 每孔加入200 µL稀释后的EME或胶原蛋白溶液,确保完全覆盖孔底表面。在37 °C组织培养孵箱中孵育1–2小时。同时,根据表4配制大鼠肠道类器官二维单层培养基(rIOM2D)。
- 单层细胞的制备
- 吸除含有类器官的35 mm培养皿中的培养基,加入1 mL PBS。
- 用P1000枪头刮擦孔内表面以破坏基质胶(EME),上下吹打约20次以充分松解所有EME,然后将全部液体转移至15 mL锥形管中。
- 向35 mm培养皿中再加入1 mL PBS,回收残留的类器官,并将液体转移至同一15 mL锥形管中。
- 以350 × g离心2分钟,吸除上清液(包括EME残留物)。向类器官沉淀中加入1 mL胰蛋白酶溶液,在37 °C孵育2分钟。
- 用P1000枪头上下吹打10次,随后加入2 mL AdDMEM+以中和胰蛋白酶活性。
- 以350 × g离心5分钟,吸除上清液,加入4.8 mL rIOM2D(见表4),重悬细胞沉淀。
- 在接种类器官前,先从预包被孔中吸除AdDMEM+中多余的EME或胶原蛋白。然后,向每个预包被孔中加入200 µL含类器官的rIOM2D培养基及10 µM Y27632。
- 4–16小时后,收集培养基,以1,000 × g离心1分钟。将上清液转移至新的15 mL锥形管中,弃去沉淀。
- 用300 µL PBS洗涤每孔,然后向每孔加入200 µL经离心处理的rIOM2D。每2–3天更换一次rIOM2D,并停止使用Y27632。
- 由二维单层细胞重建三维类器官
注:在EME上生长的单层细胞可被诱导重新形成三维类器官,而在I型胶原蛋白上生长的单层细胞则难以有效恢复为三维类器官。通常,在第5天时,可将来自2–3孔单层培养的类器官用于形成一个体积为50 µL的EME半球状结构。- 将EME用rIOM2D按1:4稀释。当单层细胞达到约80%融合度时,小心吸除培养基,并向含单层细胞的孔中加入100 µL稀释后的EME。
- 在37 °C、5% CO2的组织培养孵箱中孵育20分钟。随后,向每孔加入100 µL rIOM2D,并放回孵箱继续培养。加入稀释EME后5天内可形成三维类器官。
- 当小型类器官重新形成(约第5天)时,准备rIOM培养基。收集各孔内容物,上下吹打以破坏EME结构,转移至15 mL锥形管中。
- 以350 × g离心2分钟,吸除上清液及EME残留物。
- 加入1 mL冷的AdDMEM+,以350 × g离心2分钟,弃去上清液,保留约50 µL液体。
- 将剩余的50 µL液体及类器官转移至一份250 µL的EME分装液中,上下吹打使类器官均匀分布于EME中。
- 将50 µL EME半球状液滴加入35 mm培养皿中,在组织培养孵箱中孵育20分钟以凝固。
- 加入2 mL rIOM培养基及10 µM Y27632。每2–3天更换一次生长培养基;换液时可省略Y27632。
6. 基因操作
- 二维单层细胞的瞬时转染
警告:按照第5.1节在48孔板中制备大鼠肠上皮单层细胞。转染必须在细胞融合度为70%–80%时进行。每次转染前,务必用200 µL新鲜的rIOM2D培养基替换各孔中的原有培养基。测定质粒DNA在260/280 nm和260/230 nm处的吸光度比值;该比值必须高于1.8,以确保良好的转染效果。
注意:使用质粒对照以计算转染效率。建议使用编码荧光蛋白的质粒以便观察。本方案中使用了pLJM1-EGFP27。- 配制1 mg/mL的20 kDa聚乙烯亚胺(PEI;表3)。每孔分别准备A管(0.6 µg质粒 + 50 µL低血清培养基)和B管(1.8 µL PEI + 50 µL低血清培养基)。保持DNA:PEI质量比为1:3。
- 将两管分别涡旋30秒。将A管与B管混合后再次涡旋30秒。如有需要,可短暂离心。室温孵育20分钟。
- 将DNA/PEI复合物轻柔地逐滴加入二维单层细胞中。轻轻摇动培养板以混匀。在37 °C、5% CO2条件下孵育。通常在24小时后可检测到表达。
注意:若需恢复为三维类器官结构,转染后需等待48小时再加入稀释的EME。
- 大鼠肠类器官的慢病毒转导
注意:操作慢病毒前,须获得所在机构的适当授权并接受专业培训。处理慢病毒时必须穿戴合适的个人防护装备(PPE)。虽然此处未详细说明,但高质量且高浓度的慢病毒对于成功感染类器官至关重要。本方案使用空载pLJM1-EGFP载体27表达可溶性GFP。本方案改编自先前发表的方法28。转导效率取决于病毒颗粒的质量与浓度、类器官解离成小细胞簇的效率以及所表达的基因。感染后第5天测得的平均转导效率在筛选前为19.4%(±6.5%标准差)。- 在进行慢病毒感染前2天,计划对每种待转导的慢病毒,在24孔板中传代两个高密度孔(参见第3节)。每个24孔板的孔可容纳一个50 µL的EME凝胶圆顶。
- 待EME凝固后,加入0.5 mL含有10 mM烟酰胺、10 µM Y27632和2.5 µM CHIR99021的rIOM培养基。这将诱导形成较大的球状结构,有利于提高慢病毒转导效率。接种后2天内,大鼠类器官应发育为较大的球状体。若观察到明显分化(如出芽),则需重新传代类器官。
- 将浓缩病毒置于冰上解冻。根据表3配制新鲜的转导培养基。
- 使用P1000枪头,通过反复吹打将EME凝胶圆顶从细胞培养皿底部释放至培养基中。继续上下吹打约20次,以打碎EME并释放类器官。
- 将类器官和培养基转移至15 mL锥形管中。只要类器官基因型相同且来自同一条系,所有孔的样本可合并于同一管中。
- 用1 mL冷的AdDMEM+洗涤每个孔两次,收集洗涤液并转移至同一15 mL锥形管中。
- 使用玻璃巴斯德吸管机械性地破坏大鼠类器官。此步骤至关重要,目标是获得小的多细胞簇。上下吹打约30次。在显微镜下使用4倍物镜检查解离效果。持续操作直至细胞悬液主要由细胞簇组成,仅剩少量完整类器官。
注意:也可选择将类器官在室温下以200 × g离心5分钟,小心弃去上清液,然后重悬于1 mL预热至37 °C的重组酶溶液(替代常规胰蛋白酶/EDTA)中。将类器官在37 °C水浴中孵育2分钟,并定期涡旋以促进解离。避免长时间孵育,以免导致细胞死亡。定期在显微镜下使用4倍物镜检查解离效果。当悬液主要由单个细胞组成且细胞团极少时,加入4 mL AdDMEM+稀释酶溶液,随后进行下一步操作。 - 将含有细胞簇的15 mL锥形管在4 °C下以200 × g离心5分钟。小心移除并弃去上清液,注意不要扰动细胞沉淀。
- 每孔感染所需的细胞簇用230 µL转导培养基重悬。每种慢病毒感染使用48孔板的一个孔。
- 将230 µL细胞悬液接种至标记好的48孔板各孔中。每孔加入20 µL浓缩病毒。使用P1000枪头混匀病毒与细胞溶液,并用透明封板膜密封培养板。
- 进行离心感染(spinoculation):在32 °C下以600 × g离心1小时。打开封膜后,在37 °C、5% CO2条件下孵育6小时。
- 将24孔板预热至37 °C培养箱中。
- 孵育结束后,将每孔液体反复吹打混匀,并转移至标记好的1.5 mL离心管中。用750 µL AdDMEM+洗涤每孔,并将洗涤液转移至同一离心管中。将离心管在4 °C下以600 × g离心5分钟。
- 从离心机中取出离心管并置于冰上。使用P1000枪头小心移除上清液并妥善处理。
- 将细胞沉淀重悬于EME中,并将50 µL凝胶滴加至预热的24孔板中。在37 °C孵育15–20分钟,直至EME完全聚合。
- 向每孔加入500 µL含有10 mM烟酰胺、10 µM Y27632和2.5 µM CHIR99021的rIOM培养基。
- 感染后第1天,更换为含10 µM Y27632的rIOM培养基。每2–3天更换一次培养基。若需进行筛选,应在感染后48–72小时加入筛选药物。对于嘌呤霉素筛选,使用2 µg/mL嘌呤霉素。
7. 类器官的免疫荧光全 mount 染色
- 吸弃培养基,向细胞培养皿中的类器官加入含吐温-20的磷酸盐缓冲液(PBS-T)配制的4%多聚甲醛(PFA)(表3),室温孵育10分钟。
- 通过反复吹打使类器官从EME中释放,收集类器官至0.75 mL离心管中。数分钟内类器官将因重力沉降至管底。如有需要,以100 × g 离心1分钟。
- 使用移液管吸除PFA,用PBS-T重悬类器官。待类器官沉降至管底后,吸除PBS-T,再用200 µL封闭液(表3)重悬。
- 室温下置于摇床或旋转混合仪上孵育45分钟。类器官可能聚集并沉降至管底,期间可定期轻弹管壁以重新悬浮并分散于溶液中。
- 让类器官沉降至管底。如有需要,以100 × g 离心1分钟,随后吸除封闭液。
- 将一抗用100 µL封闭液稀释后加入。室温下于旋转混合仪上以24 rpm孵育45分钟。一抗浓度根据所用抗体不同而有所差异。
注:此步骤可根据一抗特性延长,最长可至4 °C过夜孵育。 - 让类器官沉降至管底。如有需要,以100 × g 离心1分钟。
- 使用移液管用PBS-T洗涤5次,每次在旋转混合仪上以24 rpm室温孵育5分钟。重复该洗涤步骤两次。
- 加入用100 µL封闭液稀释的二抗(1:200稀释)和50 µg/mL的4′,6-二脒基-2-苯基吲哚(DAPI)。室温下于旋转混合仪上以24 rpm孵育30分钟。
- 让类器官沉降至管底。如有需要,以100 × g 离心1分钟,吸除二抗溶液,并用移液管以PBS-T洗涤5次。
- 室温下于旋转混合仪上以24 rpm孵育5分钟,重复洗涤步骤两次。
- 在类器官洗涤过程中,将一份VALAP封片剂(表3)加热至40–50 °C使其液化。使用画笔在载玻片上涂抹一层约盖玻片大小的薄层VALAP方块,使用22 mm × 22 mm No. 1.5盖玻片。
- 用剪刀剪去P200移液器吸头末端,将类器官转移至载玻片上的VALAP凹槽中。用擦拭纸小心吸除PBS-T,注意避免类器官干燥。
- 用抗荧光淬灭封片剂(表3)充满VALAP凹槽。对于约22 mm × 22 mm的区域,需使用100–150 µL抗荧光淬灭剂。
- 类器官可能出现聚集,必要时可用移液器吸头轻轻搅动抗荧光淬灭剂以重新分布类器官。加盖22 mm × 22 mm No. 1.5盖玻片,避免产生气泡,并在盖玻片边缘涂上一层薄薄的VALAP以密封。
注:对于倒置显微镜,类器官也可封片于35 mm玻璃底培养皿中。
8. 霍乱素诱导的大鼠肠道类器官肿胀
- 在传代后使用rIOM培养类器官3-5天。建议将类器官培养于24孔板中,以确保能够方便地对同一区域进行重复成像。在添加佛司可林之前(T0)采集图像。
- 将佛司可林(表3)直接加入类器官培养基中,使其终浓度为10 µM。向对照孔中加入等体积的二甲基亚砜(DMSO)。
- 以15-30分钟为间隔,定期对对照组和佛司可林处理组的孔进行成像。非成像期间,将类器官置于培养箱中,或使用带有培养控制功能的成像系统。最大膨胀效应应在120分钟内观察到。
- 按照标准方案,根据获取的图像计算相对膨胀率29。
结果
采用第2节所述方案制备大鼠十二指肠和空肠类器官。在隐窝分离步骤中,必须高效地从PBS中去除绒毛组织。若将过多绒毛与隐窝一同接种至EME中,可能导致整个培养物死亡,无法成功建立类器官系。因此,建议在解剖显微镜下进行隐窝分离,以便直观确认绒毛的去除情况。图1展示了典型的绒毛片段与隐窝(图1A)。请注意隐窝尺寸明显小于绒毛(图1B)。接种后,隐窝将在接下来的数日内逐渐扩展为球形结构,并在第4至7天开始出芽并发生分化(图2)。当类器官发育至大量出芽阶段时,应进行传代。传代过程中,需充分解离类器官以使隐窝芽体彼此分离,从而实现类器官数量的扩增(图3B)。
类器官在冻存后的成功复苏在很大程度上取决于其冻存时的状态。处于高度增殖且未分化状态的类器官复苏效率最高。因此,我们建议诱导类器官保持球形和囊状结构,而非出芽状或分化状态。为实现这一目标,可通过增加培养基中Wnt配体R-spondin的含量,并在培养基中添加烟酰胺(nicotinamide)以过度激活Wnt信号通路,后者已被证明可在多种培养系统中促进类器官形成并支持细胞存活30,31。图3A展示了复苏后仅2天的健康类器官培养状态。在复苏过程中于培养基中添加BSA也有助于大鼠肠类器官培养物的存活,因为大鼠肠类器官已被证实比小鼠肠类器官更为脆弱。
尽管3D类器官培养常被优先选用,因其能够模拟部分正常肠道结构,但该方法使其他技术操作(包括活体成像、转染和慢病毒转导)在技术上更具挑战性。利用由3D类器官衍生的2D单层细胞培养32 (图4)可实现更高效率的质粒导入。尽管三维肠道类器官传统上对瞬时转染具有抗性,但使用基于脂质的转染方法可成功导入编码EGFP的质粒。步骤6.1中概述了使用PEI的最具成本效益的方法。图5),但电穿孔和市售转染试剂也获得了可比的结果(数据未显示)。未来的研究将聚焦于这些方法是否可用于将CRISPR载体导入单层细胞。
在转染后能够从二维单层细胞重新形成三维类器官非常重要,这样可使类器官作为具有隐窝三维结构特征的可传代细胞系进行维持。有趣的是,当将EME重新加至铺在EME上的二维单层细胞顶部时,这些细胞可迅速重新形成小的球状体;而I型胶原基质则不足以支持三维结构的重建(图6)。
尽管瞬时转染在许多研究中具有应用价值,但构建稳定细胞系往往更为有用,这需要将慢病毒导入细胞中。本研究通过改进已发表的方案,对大鼠肠道类器官进行慢病毒感染(图7)。该方案中的关键步骤是将类器官消化为小的细胞团或细胞簇。如果类器官未被有效解离而保持完整结构,慢病毒颗粒将无法进入细胞。感染后,类器官需要恢复并重新生长。本方案所述方法可在筛选前实现10%–48%(平均:19.4% ± 6.5%)的细胞摄取病毒颗粒。
类器官的整体染色可能因EME残留物去除不完全或抗体渗透不充分而变得困难。本文所述方案可实现类器官的可靠染色。若类器官距离盖玻片过远,在共聚焦显微镜下观察也可能存在困难。通过使用VALAP,可形成具有一定高度的凹室,使类器官不会被盖玻片压碎,同时仍能沉降到靠近盖玻片的位置,便于成像。图8展示了针对顶端阴离子通道——囊性纤维化跨膜传导调节因子(CFTR)以及标记F-肌动蛋白的鬼笔环肽的代表性染色结果。
最后,类器官在功能检测中具有应用价值。来自囊性纤维化患者的类器官已被用于筛选CFTR功能,因为使用cAMP激动剂佛司可林处理可诱导强烈的CFTR介导的液体分泌,导致类器官肿胀。29,33-37本研究的一个目标是鉴定并建立一种可平行使用的类器官模型 体内 临床前研究。因此,我们旨在确定大鼠肠道类器官是否会发生佛司可林诱导的肿胀。事实上,在佛司可林处理后30分钟内,大鼠类器官即出现肿胀,至120分钟时达到最大效应(图9).
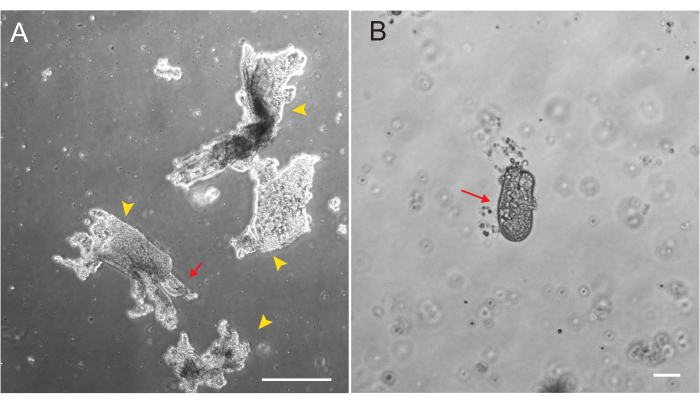
图1:上皮细胞分离过程中的绒毛片段与隐窝。(A)在EDTA溶液中进行隐窝分离过程中绒毛片段的代表性图像。黄色箭头标记绒毛片段。红色箭头指示附着在绒毛片段上的隐窝。注意相对大小的差异。(B)单个隐窝(红色箭头)的高倍放大图像,以便观察其形态。比例尺:100 µm。请点击此处查看该图的放大版本。
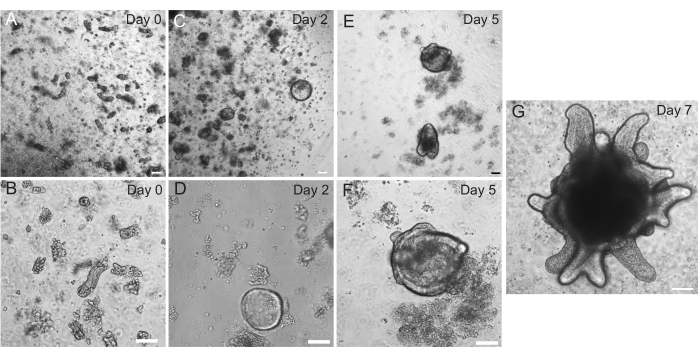
图2:大鼠小肠类器官发育过程。 大鼠空肠隐窝在分离后立即接种于EME培养基中(A,B)。2天内,隐窝形成球状体(C,D)。至第5天,开始出现隐窝芽(E,F),到第7天进一步发育并生长(G)。比例尺:100 µm。请点击此处查看该图的高清版本。
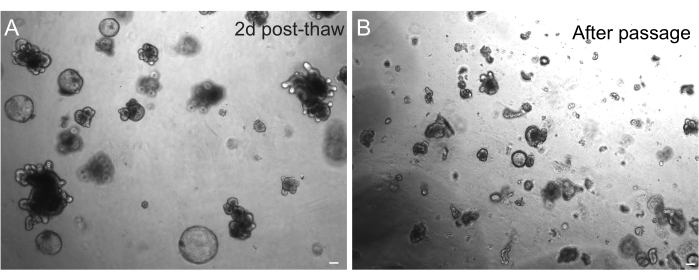
图3解冻和传代后的类器官 (A大鼠空肠类器官在冻存后按照所述方案解冻。解冻后仅2天即可观察到球状体和出芽状类器官。B) 图中所示为同一种类的类器官细胞系 A 传代后立即按照上述方案进行操作。注意观察各结构之间的相对大小差异 A 和 B 以及隐窝样单结构域的存在 B比例尺: 100 µm. 请点击此处以查看此图的放大版本。
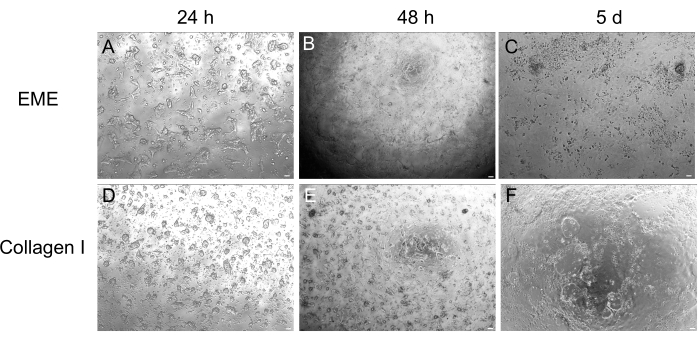
图4:从3D类器官形成2D单层细胞。 (A-C)在EME上2D单层细胞的形成过程。(D-F)在胶原蛋白I上2D单层细胞的形成过程。至第5天,各条件下均达到约80%融合度。比例尺:100 µm。 请点击此处查看该图的放大版本。
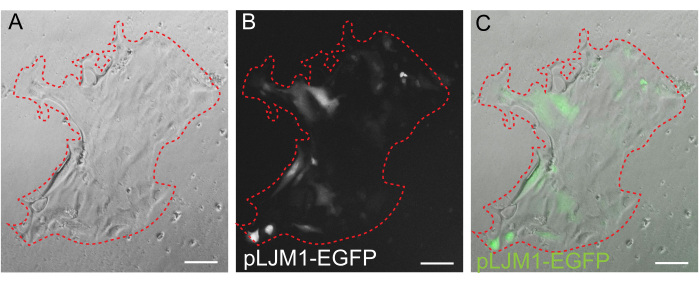
图5:二维单层细胞的瞬时转染。 在EME上生长的二维单层细胞使用PEI瞬时转染pLJM1-EGFP质粒的代表性图像。(A) 明场,(B) 荧光(GFP),(C) 叠加图。红色虚线标记单层细胞边界。比例尺:100 µm。 请点击此处查看该图的放大版本。
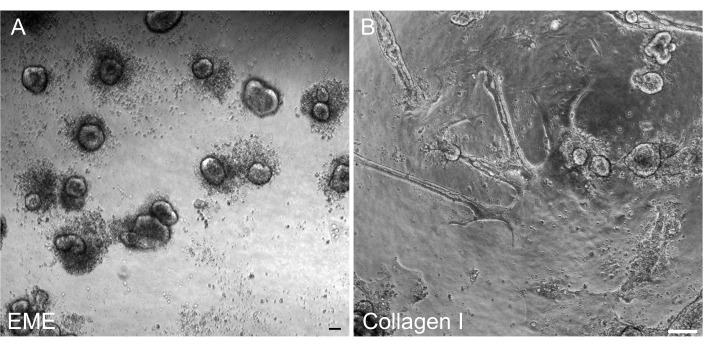
图6:在EME上由二维单层细胞重构成三维类器官。(A)在EME上生长的二维单层细胞形成三维类器官。在将EME添加至单层细胞顶面后5天内,类器官高效形成。注意小的三维球状体周围存在大量死亡细胞。(B)在将胶原蛋白I添加至在胶原蛋白I上生长的二维单层细胞顶面后5天,单层结构仍持续存在。比例尺:100 µm。请点击此处查看该图的放大版本。
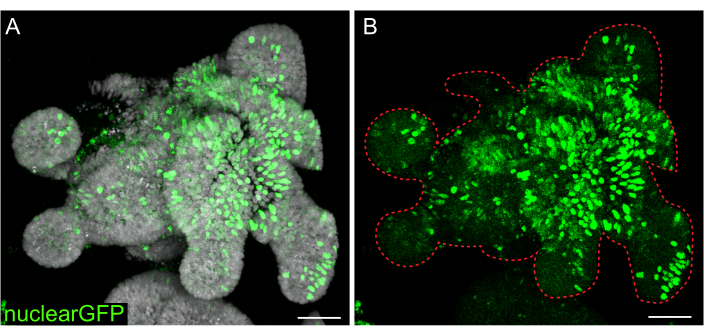
图7:3D类器官的慢病毒感染。 大鼠空肠类器官使用所述方案感染携带细胞核定位GFP的慢病毒颗粒。经过5天的恢复和生长后,类器官被固定并用DAPI复染。(A) DAPI:灰色;nuclearGFP:绿色。(B) nuclearGFP:绿色。红色虚线标记类器官边界。比例尺:50 µm。 请点击此处查看该图的放大版本。
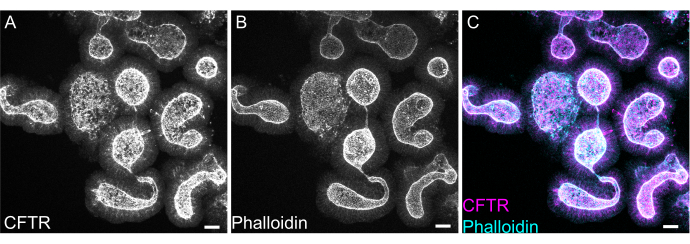
图8:大鼠肠道类器官的全 mount 免疫荧光染色。 (A)CFTR,(B)鬼笔环肽,以及(C)大鼠空肠类器官的合并全 mount 免疫荧光图像。注意类器官中CFTR染色在顶膜的富集(A中为灰色,C中为品红色)。鬼笔环肽标记F-肌动蛋白,显著标记顶膜刷状缘(B中为灰色,C中为青色)。比例尺:25 µm。 请点击此处查看该图的放大版本。
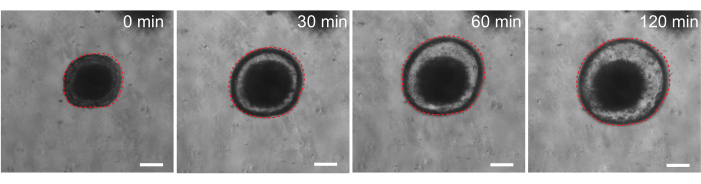
图9:大鼠肠道类器官在佛司可林刺激下发生膨胀。 添加cAMP激动剂佛司可林后,大鼠肠道类器官膨胀的代表性时间过程。0分钟时间点表示添加10 µM佛司可林之前的时刻。图像显示同一类器官在30分钟间隔下的变化。在添加佛司可林后120分钟观察到最大膨胀。红色虚线标出类器官边界。类器官腔中央的深色物质由死亡细胞组成。比例尺:100 µm。 请点击此处查看该图的放大版本。
表1:AdDMEM+ 配方。用于配制标准 AdDMEM+ 培养基的成分,该培养基是本实验方法中所使用的基础培养基。请点击此处下载该表格。
表2:大鼠肠道类器官培养基(rIOM)配方。 标准大鼠肠道类器官培养基的详细配方,包括重组蛋白的溶剂及储存条件。请点击此处下载该表格。
表3:溶液。本方案中使用的其他溶液的配方和配制方法。请点击此处下载该表格。
表4. 大鼠肠道类器官用于二维单层培养的培养基(rIOM2D)。 经改良的类器官培养基配方,优化用于单层细胞的二维生长。请点击此处下载该表格。
讨论
大鼠肠道类器官模型的建立保留了器官中重要的功能特性 体内 是临床前测试、药物筛选和功能分析的有力工具。 体外 模型可并行使用 体内 由于大鼠肠道尺寸较大、与人类具有相似的生理特征,且在某些情况下更适合作为疾病模型,因此常被选为临床前胃肠病学研究的首选模型38本文概述了一种可靠的分步操作方案,用于大鼠肠隐窝的分离、大鼠肠类器官的建立与长期培养,以及后续应用,包括功能性的佛司可林肿胀实验、整体免疫荧光染色、二维单层培养和慢病毒介导的遗传操作。在许多疾病研究背景下,当小鼠模型的病理生理学特征不适用时,大鼠肠类器官可能更具相关性,并且相较于小鼠肠类器官,可能更接近人类肠道生理,提供更优的模型系统。
为了建立可传代和扩增的长期类器官培养体系,关键在于确定维持肠道上皮细胞增殖所需的核心生长因子。小鼠类器官通常在含有EGF、R-spondin和Noggin的简单混合培养基中培养,尽管已有报道指出Noggin在肠道类器官培养中并非必需39。条件培养基可替代重组生长因子,其中最常用的细胞系包括L-WRN(可分泌Wnt3a、Rspondin-3和Noggin)39、L-Wnt3a以及HA-Rspondin1-Fc 293T细胞40。L-WRN条件培养基不仅足以支持小鼠肠道39类器官的生长,还可支持多种家畜和伴侣动物肠道类器官的生长,这些动物包括狗、猫、鸡、马、牛、羊和猪12。然而,人类肠道类器官在生长因子需求方面存在显著差异,其扩增生长阶段(即从小球体向大球体发育)与分化阶段(即分化细胞类型的生成与成熟)需要不同的培养基配方10。大鼠肠道类器官的培养基需求与人类肠道类器官的扩增生长培养基非常相似,但值得注意的是,大鼠类器官在此培养条件下既能生长又能分化,从而显著简化了其培养要求。尽管我们最初的尝试集中于在L-WRN条件培养基中建立和培养大鼠肠道类器官,但长期培养效果不稳定,大鼠肠道类器官系表现出生长不够稳健的问题(数据未显示)。这可能是因为L-WRN细胞系被设计为分泌R-spondin 3,而本文推荐使用的293T-Rspo1细胞系则被设计为分泌R-spondin 1。大鼠和人类类器官可能更偏好R-spondin 1,这或许可以解释大鼠类器官系在L-WRN条件培养基中培养失败的原因。
为了最接近地模拟 体内 环境,建立能够支持干细胞存活、维持和增殖,并能保持细胞更新及同时向不同类型细胞分化的类器官培养条件至关重要。因此,必须严格滴定并控制重组蛋白和/或条件培养基中蛋白质的浓度,以实现这一理想平衡。特别是,Wnt 信号通路的最适水平对于避免肠类器官培养失败至关重要。条件培养基中 Wnt 水平过低将无法支持生长,导致干细胞丢失并最终引起类器官死亡;而 Wnt 过度激活则会导致类器官呈囊状且无法分化10。尽管此处未详细说明,强烈建议使用 Wnt 报告基因荧光素酶检测方法(如 Topflash 细胞系)41 对每一批 L-Wnt3a 和 293T-Rspo1 条件培养基进行测试。既往研究指出,理想的 L-Wnt3a 培养基批次在浓度为 12.5% 时应产生约 15 倍的信号增强,在 50% 浓度下应产生约 300 倍的信号增强,相对于 1% L-Wnt3a 而言10。由于大鼠类器官对培养条件(尤其是 Wnt 激活水平)的敏感性高于小鼠类器官,这些额外的质量控制步骤可显著提高大鼠类器官培养的稳健性和可靠性。由于目前尚无可用于检测 Bmp 活性及 Noggin 条件培养基中 Noggin 相对浓度的类似报告细胞系,建议在可能的情况下使用重组 Noggin,以精确控制 Noggin 水平。虽然小鼠肠类器官可在无 Noggin 的条件下生长和维持39,但该方法尚未在大鼠肠类器官培养中尝试。
除了细胞培养的基本要求外,成功建立大鼠类器官系的关键在于隐窝分离过程中高效去除已分化的绒毛结构。绒毛成分污染程度较高会导致隐窝死亡,可能是由于濒死细胞释放的信号分子或对关键因子的消耗所致。为了精确且稳定地从上皮组织制备物中去除这些已分化的绒毛,建议在体视显微镜辅助下进行上皮细胞的分离操作。通过显微镜观察上皮组织的释放情况,可明确判断何时弃去PBS并更换新的溶液(图1)。在绒毛未充分去除前,不应收集隐窝。绒毛细胞属于终末分化细胞,无法在培养中形成类器官。此外,在后续对大鼠肠道类器官进行传代培养及其用于任何下游应用时,均需格外小心。若在解离试剂中孵育时间过长(10分钟),将导致显著的细胞死亡,并造成类器官系的丢失。
在此描述了一种从大鼠类器官生成肠道单层细胞的简单且快速的实验方案。EME和I型胶原基质对上皮细胞具有不同的影响,可根据研究目的加以利用。EME可促进单个细胞的快速高效黏附以及细胞突起的形成;相比之下,I型胶原包被表面则会延缓这些过程。当单层细胞达到约80%融合度时,生长在EME上的细胞会重新开始形成三维类器官结构,但因缺乏足够的物理和化学支持而无法持续生长。通过将EME上的单层细胞维持在50%–80%融合度,可防止其逆转为类器官状态。在单层细胞的顶侧表面添加稀释的EME,可促进细胞的快速恢复及紧密连接的形成 从头合成 类器官,更快速且更易形成汇聚区域。在I型胶原表面,细胞可形成均匀的单层并产生小的细胞簇。然而,在单层细胞上添加I型胶原不足以诱导类器官形成。将胚胎提取物(EME)添加至单层表面时必须进行稀释,因为新生类器官需要克服更强的机械阻力。然而,这种稀释的EME无法支持大型类器官的 robust 形成。任何 从头合成 自然从表面脱落的大鼠类器官必须立即移除并转移至未稀释的EME中,以恢复其结构支持和生长。由于此阶段类器官体积较小,不建议进行传代,直至类器官生长状态趋于稳定。目前尚不清楚EME能够支持类器官重新形成,而I型胶原是否具备此能力的潜在生物学机制。然而,已有报道称在三维胶原中培养的细胞无法形成出芽状类器官。42,43 或支持长期维持。市售的EME产品是细胞外蛋白的异质性混合物,主要成分为层粘连蛋白和IV型胶原蛋白44因此,蛋白质组成的差异以及上皮细胞利用不同细胞复合物与细胞外基质相互作用的能力,可能使得在EME中发生重塑,但在胶原蛋白I中则不能。尚未验证源自胶原蛋白I的单层细胞是否可用于EME中以支持类器官的形成与生长。
本文介绍了大鼠肠道类器官模型的遗传操作方法,并概述了3D类器官的慢病毒转导以及2D单层培养物的瞬时转染方案。为克服慢病毒转导类器官效率较低的问题,研究人员开发了一种针对2D单层培养物的瞬时转染方案。单层细胞具有扁平的形态和暴露的顶膜区域,使病毒和含DNA的复合物更易于进入。本研究采用pLJM1-EGFP载体表达EGFP报告基因,以验证该技术的有效性。转染后24小时即可观察到GFP报告基因的表达,并可在单层细胞中维持5至6天。未来针对单层细胞进行慢病毒转导的研究有望获得高于3D类器官转导的效率。利用上述方案,可将被感染的2D单层细胞重新诱导形成3D类器官,从而有助于建立稳定表达的细胞系。只要操作得当,大鼠肠道类器官可在体外长期稳定培养超过一年,经历多次传代仍保持稳定,可进行冻存、成功复苏,并通过慢病毒转导实现遗传修饰,从而满足了对一种易于操作且具有生理相关性的in vitro肠道类器官模型的需求,该模型在生理特性上与人类具有较高的相关性。
致谢
感谢Sumigray实验室和Ameen实验室成员的深入讨论。本工作获得了Charles H. Hood基金会儿童健康基金以及囊性纤维化基金会(资助号:004741P222)对KS的资助,以及美国国立卫生研究院国家糖尿病、消化与肾脏疾病研究所对NA的资助(资助号:2R01DK077065-12)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 3-D 培养基质大鼠 I 型胶原蛋白 | Cultrex/R&D Systems | 3447-020-01 | |
| 70 µm 细胞筛 | Corning/Falcon | 352350 | |
| 高级 DMEM/F12 培养基 | Gibco/Thermo Fisher | 12634010 | |
| 两性霉素 B | Sigma Aldrich | A2942-20ML | |
| B-27 添加剂(50X),无血清 | Thermo Fisher | 17504044 | |
| CHIR99021 | Cayman Chemical | 13122 | |
| CryoStor 冻存液 | Stem Cell Technologies | 100-1061 | |
| Cultrex HA-Rspondin1-Fc 293T 细胞 | R &D Systems | 3710-001-01 | |
| 胎牛血清(FBS) | Gibco/Thermo Fisher | 16-000-044 | |
| 胃泌素 I(人源) | Sigma Aldrich | G9145 | |
| 温和细胞解离试剂 | Stem Cell Technologies | 100-0485 | |
| Glutamax | Thermo Fisher | 35-050-061 | |
| 生长因子减少型 Matrigel,无酚红 | Corning | 356231 | |
| HEPES | AmericanBio | AB06021 | |
| 羊毛脂 | Beantown Chemical | 144255-250G | |
| L-谷氨酰胺 | Gibco/Thermo Fisher | A2916801 | |
| L-Wnt3a 细胞 | ATCC | CRL-2647 | |
| N-2 添加剂(100X) | Thermo Fisher | 17502-048 | |
| N-乙酰半胱氨酸 | Sigma Aldrich | A9165-5G | |
| 烟酰胺 | Sigma Aldrich | N0636 | |
| Opti-MEM I 低血清培养基 | Gibco/Thermo Fisher | 31985070 | |
| 石蜡 | Fisher Scientific | P31-500 | |
| Parafilm 封口膜 | Sigma Aldrich | P7793 | 透明薄膜 |
| 磷酸盐缓冲液(PBS) | Thermo Fisher | 10010023 | |
| 青霉素/链霉素 | Gibco/Thermo Fisher | 15140122 | |
| pLJM1-EGFP | Addgene | 19319 | |
| 聚凝胺 | Millipore | TR-1003-G | |
| 聚乙烯亚胺盐酸盐(PEI) | Sigma Aldrich | 764965 | |
| 对苯二胺 | Acros Organics/Thermo Fisher | 417481000 | |
| 嘌呤霉素 | VWR | J593-25mg | |
| 重组人 FGF2 蛋白 | Peprotech | 100-18B-250ug | |
| 重组人 IGF-1 蛋白 | Biolegend | B356441 | |
| 重组人 Noggin 蛋白 | R &D Systems | 6057-NG-100 | |
| 重组小鼠 EGF 蛋白 | Thermo Fisher | PMG8041 | |
| Sprague Dawley 大鼠 | Charles River Laboratories | 品系 001 | |
| Triton X-100 | American Bioanalytical | AB02025-00500 | |
| TrypLE Express 酶 | Gibco/Thermo Fisher | 12604013 | |
| Y27632 二盐酸盐 | Sigma Aldrich | Y0503 |
参考文献
- Beumer, J., Clevers, H. Cell fate specification and differentiation in the adult mammalian intestine. Nature Reviews. Molecular Cell BiologyI. 22 (1), 39-53 (2021).
- Sato, T., et al. Single Lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche. Nature. 459 (7244), 262-265 (2009).
- Yin, Y. -B., de Jonge, H. R., Wu, X., Yin, Y. -L. Enteroids for nutritional studies. Molecular Nutrition & Food Research. 63 (16), 1801143(2019).
- Cai, T., et al. Effects of six common dietary nutrients on murine intestinal organoid growth. PLoS One. 13 (2), e0191517(2018).
- Davoudi, Z., et al. Gut Organoid as a new platform to study alginate and chitosan mediated PLGA nanoparticles for drug delivery. Marine Drugs. 19 (5), 282(2021).
- Vlachogiannis, G., et al. Patient-derived organoids model treatment response of metastatic gastrointestinal cancers. Science. 359 (6378), 920-926 (2018).
- Yin, Y. B., de Jonge, H. R., Wu, X., Yin, Y. L. Mini-gut: a promising model for drug development. Drug Discovery Today. 24 (9), 1784-1794 (2019).
- Zietek, T., et al. Organoids to study intestinal nutrient transport, drug uptake and metabolism - update to the human model and expansion of applications. Frontiers in Bioengineering and Biotechnology. 8, 577656(2020).
- Gunther, C., Winner, B., Neurath, M. F., Stappenbeck, T. S. Organoids in gastrointestinal diseases: from experimental models to clinical translation. Gut. 71 (9), 1892-1908 (2022).
- Pleguezuelos-Manzano, C., et al. Establishment and culture of human intestinal organoids derived from adult stem cells. Current Protocols in Immunology. 130 (1), 106(2020).
- Zhao, Z., et al. Organoids. Nature Reviews Methods Primers. 2 (1), 94(2022).
- Powell, R. H., Behnke, M. S. WRN conditioned media is sufficient for in vitro propagation of intestinal organoids from large farm and small companion animals. Biology Open. 6 (5), 698-705 (2017).
- Fagerholm, U., Johansson, M., Lennernas, H. Comparison between permeability coefficients in rat and human jejunum. Pharmaceutical Research. 13 (9), 1336-1342 (1996).
- Dubbelboer, I. R., Dahlgren, D., Sjogren, E., Lennernas, H. Rat intestinal drug permeability: A status report and summary of repeated determinations. European Journal of Pharmaceutics and Biopharmaceutics. 142, 364-376 (2019).
- Bryda, E. C. The Mighty Mouse: the impact of rodents on advances in biomedical research. Missouri Medicine. 110 (3), 207-211 (2013).
- Zhang, Z., Carriero, N., Gerstein, M. Comparative analysis of processed pseudogenes in the mouse and human genomes. Trends in Genetics. 20 (2), 62-67 (2004).
- Lambracht-Washington, D., Fischer Lindahl, K. Active MHC class Ib genes in rat are pseudogenes in the mouse. Immunogenetics. 56 (2), 118-121 (2004).
- Busslinger, G. A., et al. Human gastrointestinal epithelia of the esophagus, stomach, and duodenum resolved at single-cell resolution. Cell Reports. 34 (10), 108819(2021).
- Burclaff, J., et al. A proximal-to-distal survey of healthy adult human small intestine and colon epithelium by single-cell transcriptomics. Cellular and Molecular Gastroenterology and Hepatology. 13 (5), 1554-1589 (2022).
- Haber, A. L., et al. A single-cell survey of the small intestinal epithelium. Nature. 551 (7680), 333-339 (2017).
- Olivier, A. K., Gibson-Corley, K. N., Meyerholz, D. K. Animal models of gastrointestinal and liver diseases. Animal models of cystic fibrosis: gastrointestinal, pancreatic, and hepatobiliary disease and pathophysiology. American Journal of Physiology. Gastrointestinal and Liver Physiology. 308 (6), G459-G471 (2015).
- Lu, P., et al. Animal models of gastrointestinal and liver diseases. Animal models of necrotizing enterocolitis: pathophysiology, translational relevance, and challenges. American Journal of Physiology. Gastrointestinal and Liver Physiology. 306 (11), G917-G928 (2014).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture condition. Cell Stem Cell. 23 (6), 787-793 (2018).
- Hedrich, W. D., et al. Development and characterization of rat duodenal organoids for ADME and toxicology applications. Toxicology. 446, 152614(2020).
- How to Cryopreserve Intestinal Organoids. STEMCELL. , Available from: https://www.stemcell.com/technical-resources/area-of-interest/organoid-research/intestinal-research/tech-tips-protocols/how-to-cryopreserve-intestinal-organoids.html (2023).
- How to Thaw Intestinal Organoids. STEMCELL. , Available from: https://www.stemcell.com/technical-resources/educational-materials/protocols/how-to-thaw-intestinal-organoids.html (2023).
- Sancak, Y., et al. The Rag GTPases bind raptor and mediate amino acid signaling to mTORC1. Science. 320 (5882), 1496-1501 (2008).
- Van Lidth de Jeude, J. F., Vermeulen, J. L., Montenegro-Miranda, P. S., Vanden Brink, G. R., Heijmans, J. A protocol for lentiviral transduction and downstream analysis of intestinal organoids. Journal of Visualized Experiments. (98), e52531(2015).
- Boj, S. F., et al. Forskolin-induced swelling in intestinal organoids: an in vitro assay for assessing drug response in cystic fibrosis patients. Journal of Visualized Experiments. (120), e55159(2017).
- Regent, F., et al. Nicotinamide promotes formation of retinal organoids from human pluripotent stem cells via enhanced neural cell fate commitment. Frontiers in Cellular Neuroscience. 16, 878351(2022).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Breau, K. A., et al. Efficient transgenesis and homology-directed gene targeting in monolayers of primary human small intestinal and colonic epithelial stem cells. Stem Cell Reports. 17 (6), 1493-1506 (2022).
- Berkers, G., et al. Rectal organoids enable personalized treatment of cystic fibrosis. Cell Reports. 26 (7), 1701-1708 (2019).
- deWinter-de Groot, K. M., et al. Forskolin-induced swelling of intestinal organoids correlates with disease severity in adults with cystic fibrosis and homozygous F508del mutations. Journal of Cystic Fibrosis. 19 (4), 614-619 (2020).
- Dekkers, J. F., vander Ent, C. K., Beekman, J. M. Novel opportunities for CFTR-targeting drug development using organoids. Rare Diseases. 1, 27112(2013).
- Dekkers, J. F., et al. A functional CFTR assay using primary cystic fibrosis intestinal organoids. Nature Medicine. 19 (7), 939-945 (2013).
- van Mourik, P., Beekman, J. M., vander Ent, C. K. Intestinal organoids to model cystic fibrosis. European Respiratory Journal. 54 (1), 1802379(2019).
- Tong, T., et al. Transport of artificial virus-like nanocarriers through intestinal monolayers via microfold cells. Nanoscale. 12 (30), 16339-16347 (2020).
- Miyoshi, H., Stappenbeck, T. S. In vitro expansion and genetic modification of gastrointestinal stem cells in spheroid culture. Nature Protocols. 8 (12), 2471-2482 (2013).
- Ootani, A., et al. Sustained in vitro intestinal epithelial culture within a Wnt-dependent stem cell niche. Nature Medicine. 15 (6), 701-706 (2009).
- Xu, Q., et al. Vascular development in the retina and inner ear: control by Norrin and Frizzled-4, a high-affinity ligand-receptor pair. Cell. 116 (6), 883-895 (2004).
- Jabaji, Z., et al. Type I collagen as an extracellular matrix for the in vitro growth of human small intestinal epithelium. PLoS One. 9 (9), e107814(2014).
- Sachs, N., Tsukamoto, Y., Kujala, P., Peters, P. J., Clevers, H. Intestinal epithelial organoids fuse to form self-organizing tubes in floating collagen gels. Development. 144 (6), 1107-1112 (2017).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to Matrigel. Nature Reviews Materials. 5 (7), 539-551 (2020).
重印与许可
标签
